3.1 外源GABA减轻了盐胁迫下白三叶的氧化损伤
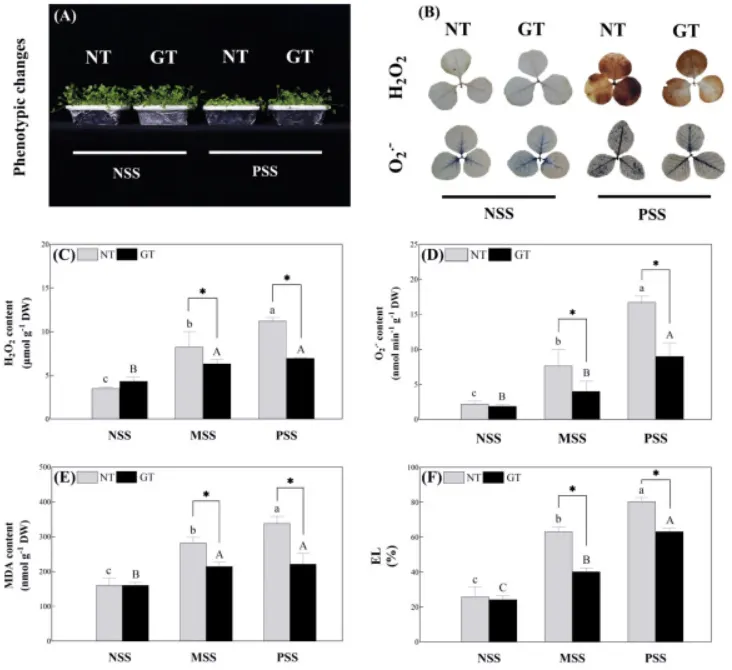
表型改善:无胁迫下GABA无不良影响;盐胁迫下GABA显著缓解了叶片萎蔫、黄化及相对含水量和叶绿素的下降。
ROS清除:盐胁迫导致H₂O₂和O₂·⁻大量积累,而GABA预处理显著降低了中度和长期盐胁迫下的ROS水平。
膜脂保护:盐胁迫加剧了脂质过氧化,GABA处理显著降低了丙二醛(MDA)含量和电解质渗漏率(EL),减轻了细胞膜损伤。
在无胁迫条件下,外源GABA预处理对白三叶的生理参数无不良影响。盐胁迫会导致明显的叶片萎蔫和黄化,并伴随叶片相对含水量和总叶绿素含量的显著下降,而GABA预处理有效缓解了这些表型损伤(Fig.1)。此外,盐胁迫引发了叶片中过氧化氢(H₂O₂)和超氧阴离子(O₂·⁻)的大量积累,GABA处理则显著降低了中度和长期盐胁迫下的ROS水平(Fig.1)。同时,盐胁迫显著升高了丙二醛(MDA)含量和电解质渗漏率(EL),而施用外源GABA大幅降低了这两个指标,表明GABA有效减轻了盐胁迫诱导的膜脂过氧化和细胞膜损伤(Fig.1)。
图1. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)表型、(B)过氧化氢(H₂O₂)染色和超氧阴离子(O₂·⁻)染色、(C)H₂O₂含量、(D)O₂·⁻含量、(E)丙二醛(MDA)含量和(F)电解质渗漏率(EL)的影响。柱状图上方不同的大写字母代表GABA处理植株(GT)在无盐胁迫(NSS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05);不同的小写字母代表未处理植株(NT)在NSS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4个独立的生物学重复)。
3.2 外源GABA改善了白三叶的光系统稳定性和水分平衡
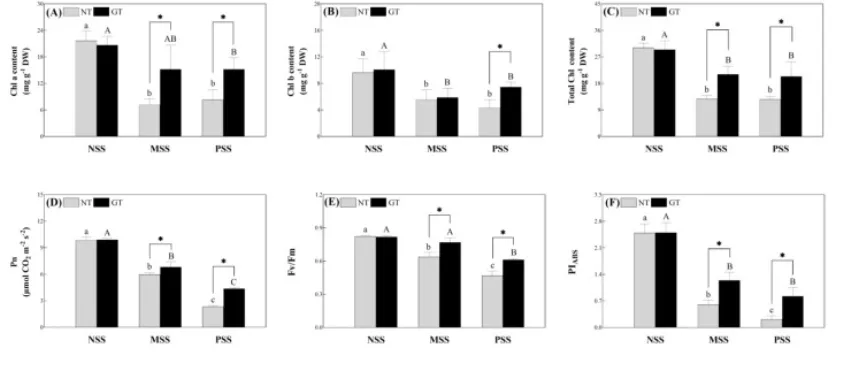
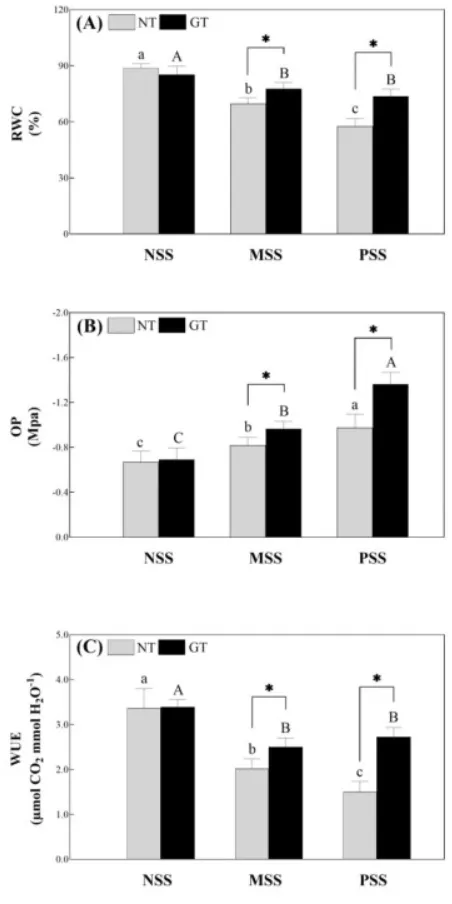
盐胁迫显著降低了白三叶叶片中叶绿素a、叶绿素b和总叶绿素的含量,而GABA预处理植株在长期盐胁迫下维持了更高的叶绿素水平(Fig.2)。同时,盐胁迫导致净光合速率(Pn)、最大光化学效率(Fv/Fm)和基于吸收的性能指数(PI_ABS)显著下降,但GABA处理显著提升了中度和长期盐胁迫下的这些光合参数,有效保护了光系统稳定性(Fig.2)。在水分平衡方面,盐胁迫导致相对含水量(RWC)、渗透势(OP)和水分利用效率(WUE)进行性下降;外源GABA不仅显著缓解了RWC的降低,还进一步降低了渗透势,并大幅提高了水分利用效率,从而增强了植株的保水能力(Fig.3)。
图2. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)叶绿素(Chl)a含量、(B)Chl b含量、(C)总Chl含量、(D)净光合速率(Pn)、(E)可变荧光与最大荧光比值(Fv/Fm)和(F)基于吸收的性能指数(PI_ABS)的影响。柱状图上方不同的大写字母代表GABA处理植株(GT)在无盐胁迫(NSS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05);不同的小写字母代表未处理植株(NT)在NSS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
图3. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)相对含水量(RWC)、(B)渗透势(OP)和(C)水分利用效率(WUE)的影响。柱状图上方不同的大写字母代表GABA处理植株(GT)在无盐胁迫(NSS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05);不同的小写字母代表未处理植株(NT)在NSS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
3.3 外源GABA在盐胁迫下预期激活了GABA支路代谢
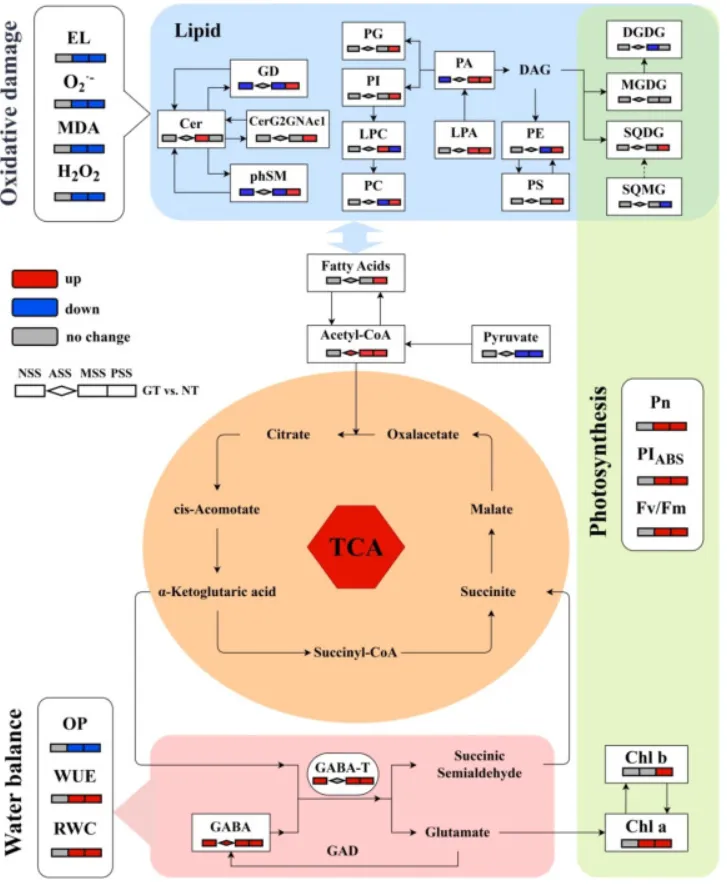
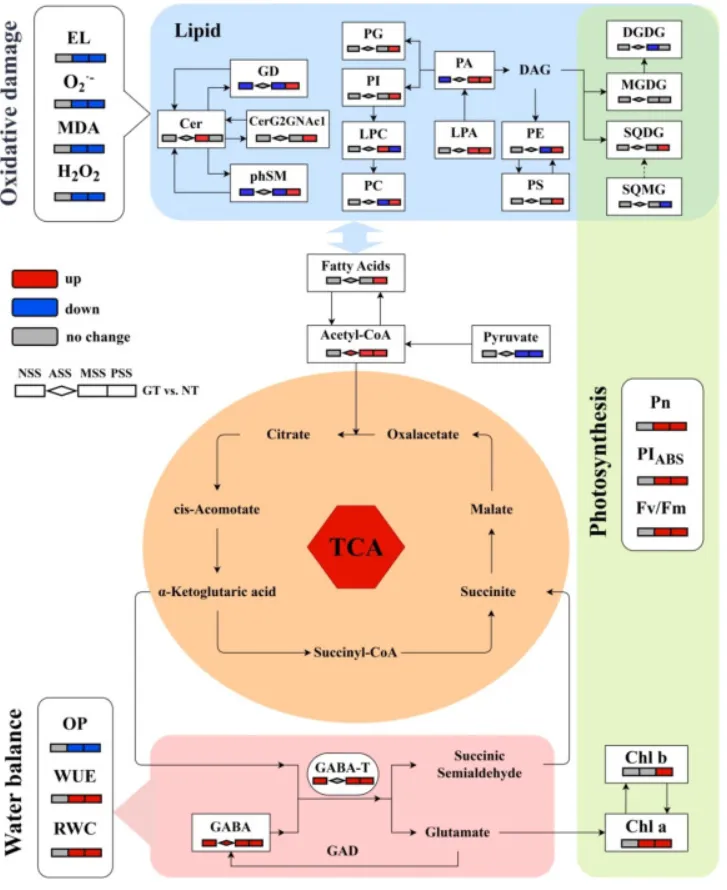
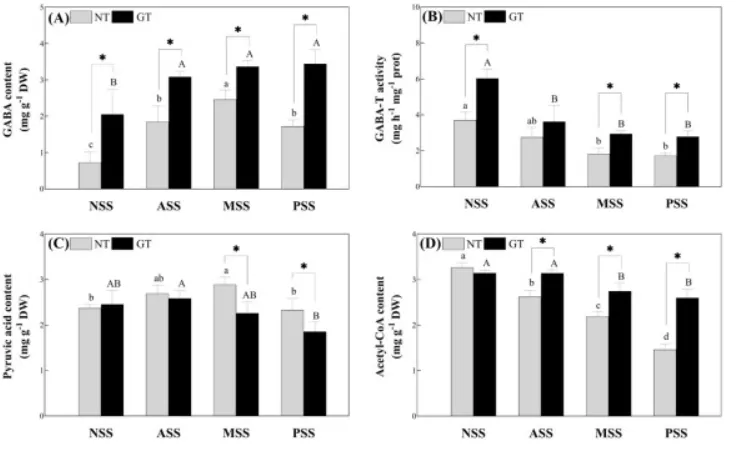
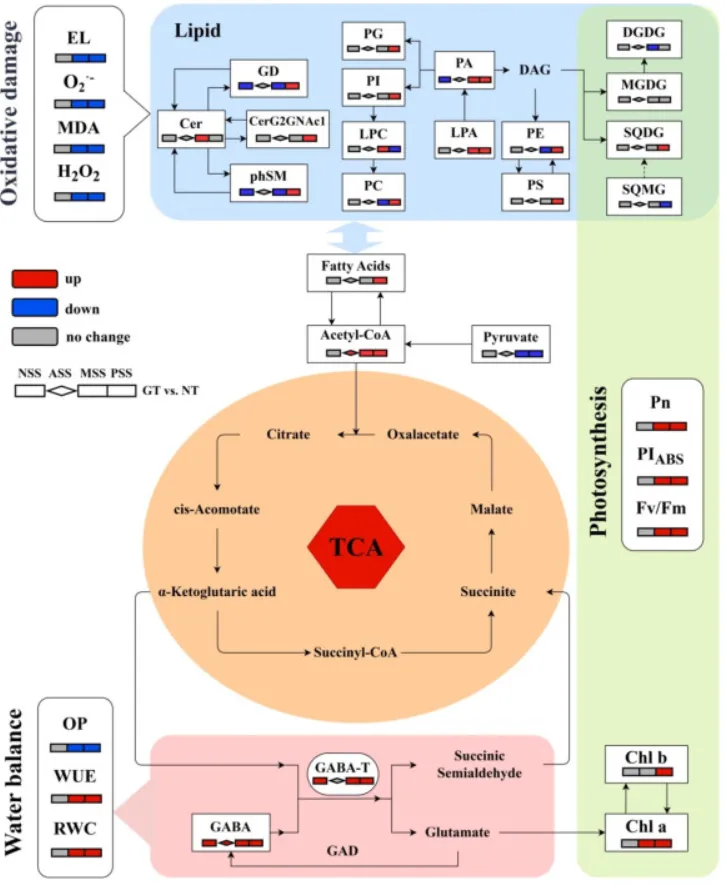
盐胁迫显著诱导了白三叶内源GABA的积累,而外源GABA预处理不仅在无胁迫下提升了内源GABA水平,在急性、中度和长期盐胁迫下也维持了更高的内源GABA含量(Fig.4)。虽然盐胁迫降低了所有植株的GABA转氨酶(GABA-T)活性,但GABA预处理植株在整个胁迫期间保持了显著高于未处理植株的酶活性(Fig.4)。此外,未处理植株在中度和长期胁迫下积累了更多的丙酮酸,而其乙酰辅酶A含量的下降趋势比GABA处理植株更为显著(Fig.4)。内源GABA和GABA-T活性的协同提升,结合乙酰辅酶A水平的维持和丙酮酸积累的减少,有力地证明了外源GABA增强了从GABA支路进入三羧酸(TCA)循环的代谢通量,为后续的脂质重编程提供了必需的能量和碳骨架(Fig.5-7)。
图4. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)内源GABA含量、(B)GABA转氨酶(GABA-T)活性、(C)丙酮酸含量和(D)乙酰辅酶A含量的影响。柱状图上方不同的大写字母代表GABA处理植株(GT)在无盐胁迫(NSS)、急性盐胁迫(ASS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05);不同的小写字母代表未处理植株(NT)在NSS、ASS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
3.4 外源GABA影响了脂质重编程和不饱和度
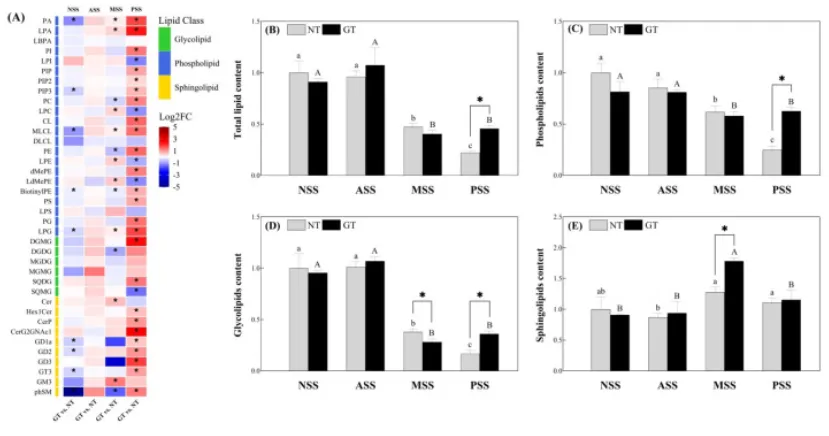
脂质重塑:GABA预处理在盐胁迫下选择性地诱导了特定信号脂质、结构磷脂、叶绿体糖脂和鞘脂的大量积累。
组分维持:盐胁迫导致总脂质、磷脂和糖脂含量进行性下降,但GABA处理有效维持了这些脂质组分的高水平。
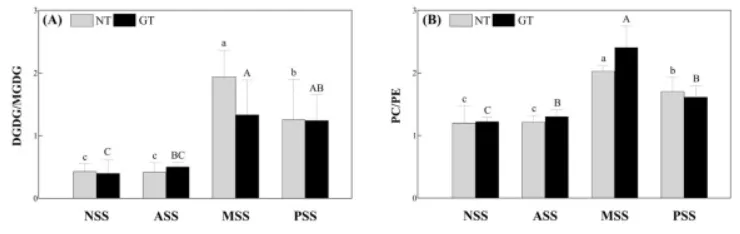
比例变化:盐胁迫增加了所有植株的DGDG/MGDG和PC/PE比值,以适应高盐环境。
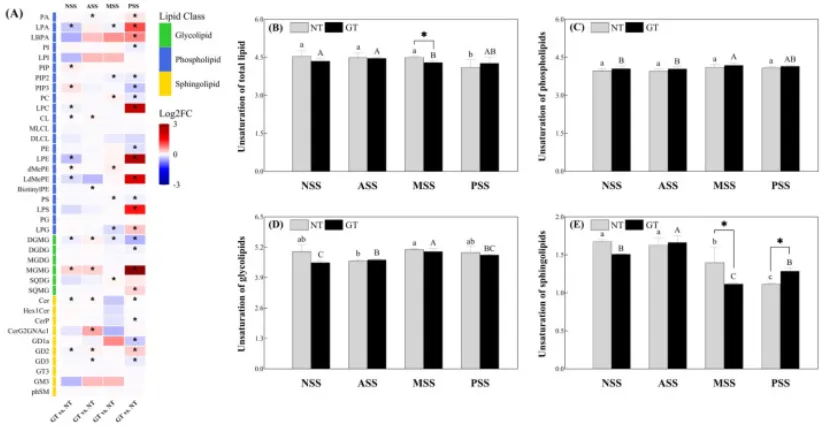
不饱和度:盐胁迫降低了多数脂质的不饱和度,GABA处理特异性地调节了总脂质和鞘脂的不饱和水平以增强膜稳定性。
脂质组学分析共鉴定出38个脂质类,包括22种磷脂、6种糖脂和10种鞘脂(Fig.5)。在盐胁迫下,GABA预处理诱导了特定脂质类的显著且选择性的积累;在中度盐胁迫下,GABA处理植株的多种磷脂和鞘脂水平显著高于未处理植株,而在长期盐胁迫下,信号脂质、结构磷脂、叶绿体糖脂及多种鞘脂的增加更为显著(Fig.5)。随着盐胁迫的加剧,总脂质、磷脂和糖脂含量逐渐下降,但GABA预处理植株在长期胁迫下维持了显著高于未处理植株的脂质水平,且鞘脂含量在中度胁迫下得到进一步提升(Fig.5)。尽管DGDG/MGDG和PC/PE比值随胁迫时间显著增加,但GABA处理与未处理植株之间无显著差异(Fig.6)。此外,大多数脂质类的不饱和度在盐胁迫期间下降;其中总脂质不饱和度的下降在GABA处理植株中更为明显,而鞘脂的不饱和度在中度胁迫下显著降低,但在长期胁迫下显著高于未处理植株(Fig.7)。这些脂质组学变化与增强的GABA支路及TCA循环活性共同构成了白三叶适应盐胁迫的代谢网络(Fig.8)。
图5. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)基于GABA处理植株(GT)相对于未处理植株(NT)的Log₂(FC,倍数变化)的38个脂质类相对含量的热图、(B)总脂质含量、(C)磷脂含量、(D)糖脂含量和(E)鞘脂含量的影响。柱状图上方不同的大写字母代表GT在无盐胁迫(NSS)、急性盐胁迫(ASS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05),不同的小写字母代表NT在NSS、ASS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、ASS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
图6. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)PC与PE比值和(B)DGDG与MGDG比值的影响。柱状图上方不同的大写字母代表GABA处理植株(GT)在无盐胁迫(NSS)、急性盐胁迫(ASS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05),不同的小写字母代表未处理植株(NT)在NSS、ASS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、ASS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
图7. 外源γ-氨基丁酸(GABA)预处理对盐胁迫下白三叶叶片(A)基于GABA处理植株(GT)相对于未处理植株(NT)的Log₂(FC,倍数变化)的38个脂质类不饱和度水平的热图、(B)总脂质不饱和度、(C)磷脂不饱和度、(D)糖脂不饱和度和(E)鞘脂不饱和度的影响。柱状图上方不同的大写字母代表GT在无盐胁迫(NSS)、急性盐胁迫(ASS)、中度盐胁迫(MSS)和长期盐胁迫(PSS)下的显著差异(P < 0.05),不同的小写字母代表NT在NSS、ASS、MSS和PSS下的显著差异(P < 0.05)。星号“*”表示在NSS、ASS、MSS或PSS下,NT和GT之间存在显著差异(P < 0.05)。数据以平均值 ± 标准差表示(n = 4)。
图8. 提出的模型展示了盐胁迫期间有无GABA预处理的白三叶中GABA支路、TCA循环、脂质重塑和光合作用的变化。




 10个月宝宝每天需要喝多少奶粉?