合作文章丨华南农业大学李唯团队揭示吡啶氮掺杂碳点供给电子促进蛋白核小球藻的光合作用和胞外电子转移的机制
- 2026-10-22 21:30:36
英文题目:Pyridinic Nitrogen Doped Carbon Dots Supply Electrons to Improve Photosynthesis and Extracellular Electron Transfer of Chlorella pyrenoidosa
中文题目:吡啶氮掺杂碳点供给电子促进了蛋白核小球藻的光合作用和胞外电子转移
期刊名称:Small
影响因子:13.3
作者单位:华南农业大学
普奈斯提供服务:酶活检测
DOI号:https://doi.org/10.1002/smll.202206222
前言
优化光合作用是为地球上所有生命提供能量和有机物的必要条件。本研究采用一锅水热法合成了吡啶氮掺杂碳点(lev-CDs),并研究了lev-CDs上官能团与蛋白核小球藻(Chlorella pyrenoidosa,C.pyrenoidosa)光合作用的构效关系。吡啶氮在lev-CDs对光合作用的促进起着关键作用。
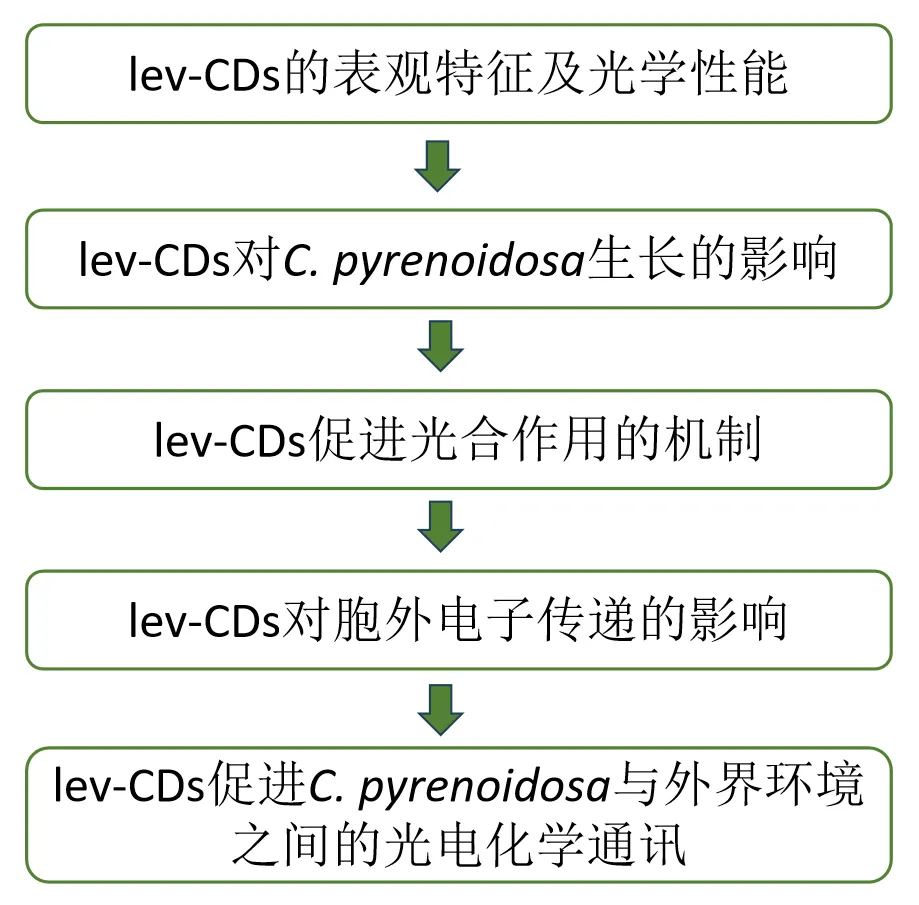
研究路线
研究结果
01
CDs的特性
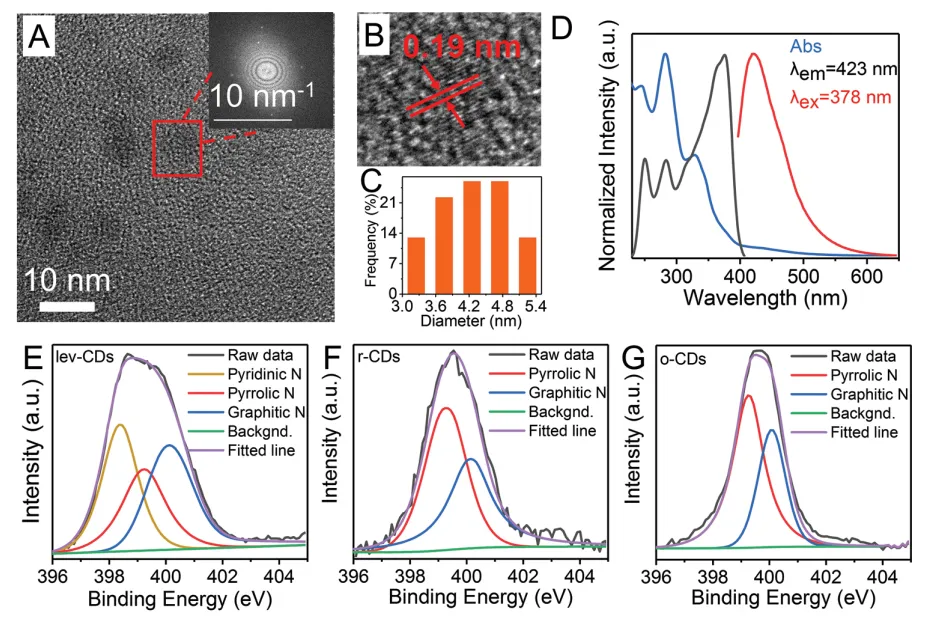
lev-CDs是平均直径约为4.2 nm的典型微球颗粒。HRTEM图像显示lev-CDs具有0.19 nm的面间距,与石墨的基底间距相对应。lev-CDs的晶体结构通过选区电子衍射(SAED)(图2A)确认。lev-CDs的光学性质如图2D所示。在紫外-可见光谱中,246和282 nm处的尖锐吸收峰可能分别属于表面有机基团C=C和C=O,而334 nm处的吸收峰对应于碳化过程中共轭氮杂环结构的π-π*。同时,lev-CDs在378 nm激发下也在423 nm处显示出最大荧光强度。
为了研究lev-CDs表面官能团对光合作用的影响,分别用NaBH4和H2O2对lev-CDs进行处理,得到还原型(r-CDs)和氧化型(o-CDs)的lev-CDs。HRTEM图像显示r-CDs和o-CDs的粒径分别为4.5和4.3 nm,表明CDs的改性对CDs的粒径影响很小。通过SAED图谱确认了r-CDs和o-CDs的晶体结构。用X射线光电子能谱分析了lev-CDs、r-CDs和o-CDs的表面化学结构,上述CDs均由C、N和O元素组成。此外,根据图2 E-G中的高分辨率N1s光谱,CDs都具有两个峰,分别归属于吡咯N(399.29±0.01 eV)和石墨N(400.14 ± 0.01 eV),而吡啶N(398.42 eV)仅出现在lev-CDs中。在r-CDs和o-CDs中吡啶N的缺失是由于NaBH4和H2O2诱导的吡啶开环反应所致。尽管lev-CDs、r-CDs和o-CDs在378 nm激发下,最大发射在423 nm左右都具有蓝色荧光,但它们的峰位之间存在一些差异。与lev-CDs相比,r-CDs和o-CDs的最大发射波长显示出轻微的红移。具体而言,经NaBH4和H2O2处理后,r-CDs的总氧含量增加,o-CDs表面官能团被氧化。在r-CDs和o-CDs上含氧官能团的增加导致了最大发射波长的红移。与lev-CDs相比,r-CDs和o-CDs在282和334 nm处的吸收峰显著降低,进一步证明在r-CDs和o-CDs中共轭氮杂环结构的π-π* 降低。
02
lev-CDs对C.pyrenoidosa生长和光合作用的促进作用
作为原始的光合作用生物,C.pyrenoidosa被用作研究CDs对光合作用影响的模型。本研究将C.pyrenoidosa与不同浓度的lev-CDs、r-CDs和o-CDs一起孵育。生长曲线如图3A-C所示,lev-CDs对C.pyrenoidosa的生长具有积极影响,而r-CDs和o-CDs反而显示出负面影响。lev-CDs对C.pyrenoidosa具有浓度依赖性,在25 mg L−1时增强最大58.59%。另一方面,在高浓度(超过25mg L-1)的lev-CDs处理组中,生长的增加趋势已经减缓,这是由于产生了相对更多的活性氧(ROS)。尽管添加高浓度的lev-CDs(超过25mg L-1)产生一定量的ROS影响C.pyrenoidosa的生长(图3D),但lev-CDs诱导的促进作用超过了ROS的不利影响。因此,选择25 mg L-1作为以下实验中lev-CDs的最佳浓度。
C.pyrenoidosa作为光合自养生物,其生物量的提高与光合作用密切相关。叶绿素参与光合作用的各个方面,包括光捕获、能量传递、电子传递和光能转换。对叶绿素含量进行定量分析,研究不同浓度的lev-CDs的影响(图3E-G)。很明显,25mgL-1的lev-CDs显著增强了叶绿素的积累,包括叶绿素a、叶绿素b和总叶绿素,这与生物量的促进相对应。较高的叶绿素含量能够将更多的光能传递到光系统的反应中心,促进细胞生长。进一步探究表明,lev-CDs含有丰富的氮(12.09%),远高于r-CDs(2.07%)和o-CDs(7.59%)。此外,从lev-CDs到o-CDs的氮含量减少约等于吡啶氮含量的4.12%。对于吡咯氮,lev-CDs中吡咯氮的含量(2.9%)低于o-CDs中吡咯氮的含量(4.46%),表明lev-CDs中吡咯氮对光合作用的正效应可以排除。由于r-CDs和o-CDs对叶绿素生成的影响相似,CDs中石墨态氮含量的差异对叶绿素积累的影响没有差异。因此,作者认为吡啶氮是促进叶绿素积累的关键因素。
另一方面,作者推测r-CDs或o-CDs处理下C.pyrenoidosa叶绿素含量的下降是由于过量的ROS的产生。为了阐明lev-CDs、r-CDs和o-CDs的ROS产生,使用DCFH-DA对C.pyrenoidosa/lev-CDs、C.pyrenoidosa/r-CDs和C.pyrenoidosa/o-CDs复合物进行ROS定量检测。图3H中DCF的荧光强度显示,与单独的C.pyrenoidosa相比,C.pyrenoidosa/r-CDs和C.pyrenoidosa/o-CDs复合物产生更多的ROS,而C.pyrenoidosa/lev-CDs复合物产生更少的ROS。此外,r-CDs和o-CDs在电子自旋共振光谱中显示出明显的DMPO·OH信号,这进一步证明了r-CDs和o-CDs产生的ROS。这一假设也得到了进一步证实,超氧化物歧化酶(SOD)和丙二醛(MDA)结果可以看出,与单独的C.pyrenoidosa相比,C.pyrenoidosa/r-CDs和C.pyrenoidosa/o-CDs显示出SOD(图3 I)和MDA含量的明显增加,因为r-CDs和o-CDs产生的过高的ROS激活了C.pyrenoidosa的抗氧化防御系统。另一方面,lev-CDs对C.pyrenoidosa无生物毒性。
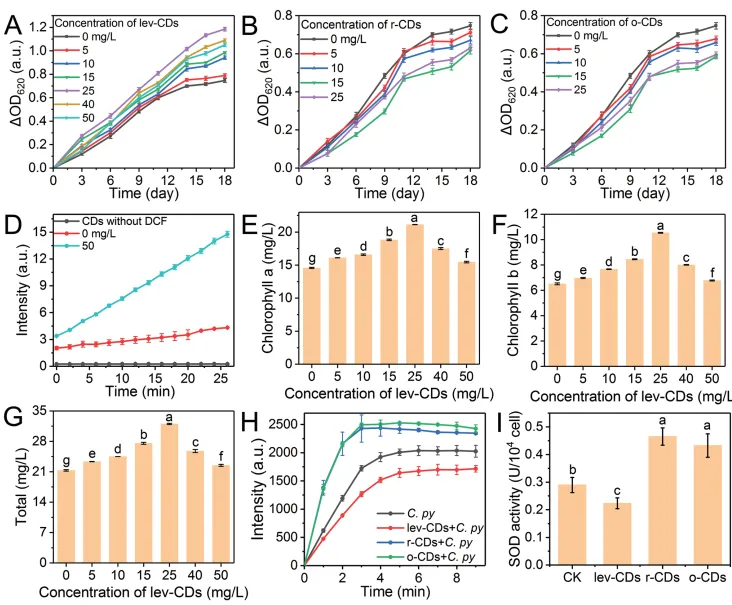
图3.C.pyrenoidosa和用不同浓度的A:lev-CDs、B:r-CDs和C:o-CDs培养下的C.pyrenoidosa的生长曲线,D:在照明下,有无50 mg L−1 lev-CDs的DCF的荧光强度,C.pyrenoidosa和用不同浓度的lev-CDs(5、10、15、25、40和50 mg L-1)处理C.pyrenoidosa后E:叶绿素a含量,F:叶绿素B含量,G:总叶绿素含量,H:C.pyrenoidosa和用不同浓度的lev-CDs(5、10、15、25、40和50 mg L-1)处理C.pyrenoidosa的DCF,I:C.pyrenoidosa和用不同浓度的lev-CDs(5、10、15、25、40和50mg L-1)处理C.pyrenoidosa的SOD
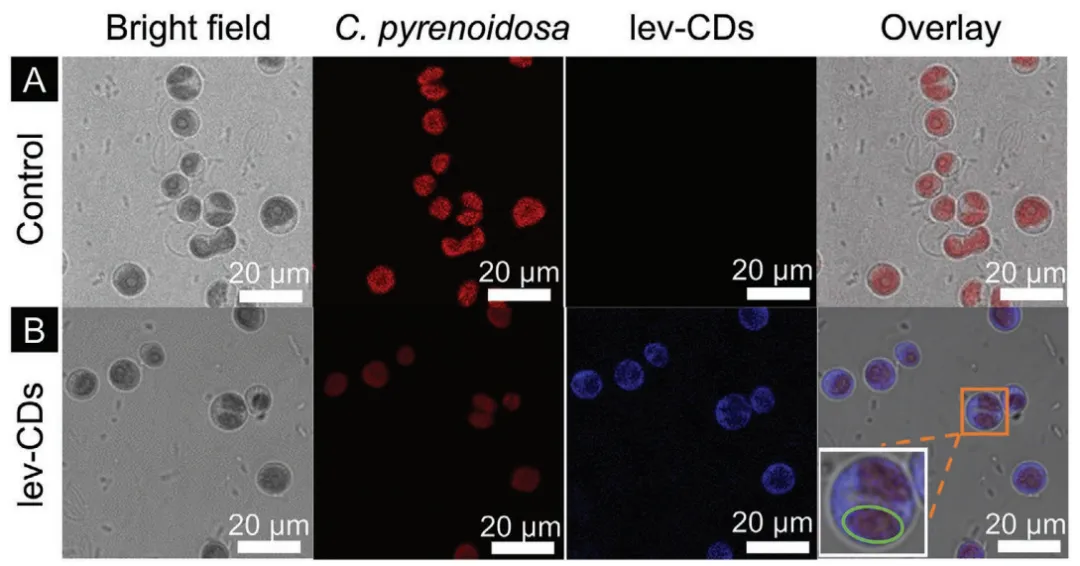
为了确认C.pyrenoidosa和lev-CDs之间的相互作用,进行共聚焦激光扫描显微镜(CLSM)表征。如图4A、B所示,在405 nm激发下,可以清楚地观察到叶绿体自发荧光的红色荧光,lev-CDs的蓝色荧光与C.pyrenoidosa的红色荧光高度重叠。根据图4B,可以在细胞的叶绿体和细胞质中发现lev-CDs,表明C.pyrenoidosa内化lev-CDs,并且lev-CDs可以与叶绿体结合。
03
lev-CDs促进光合作用的机制
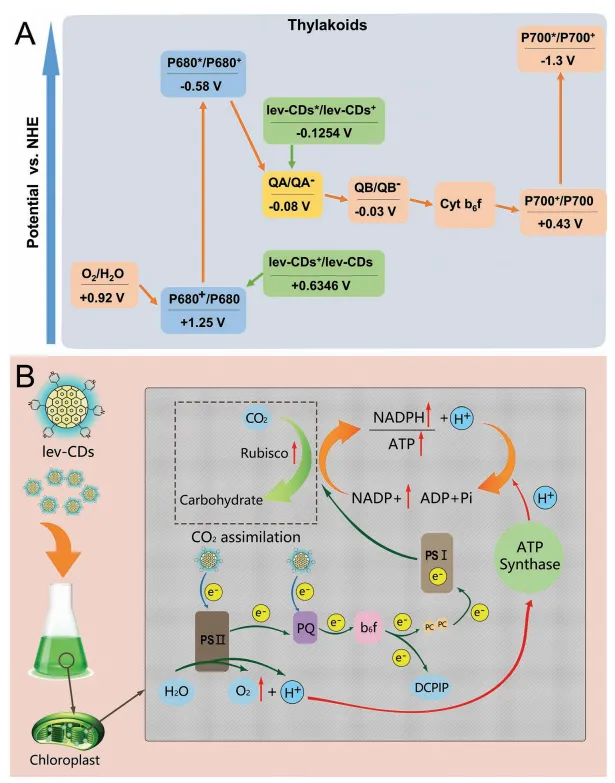
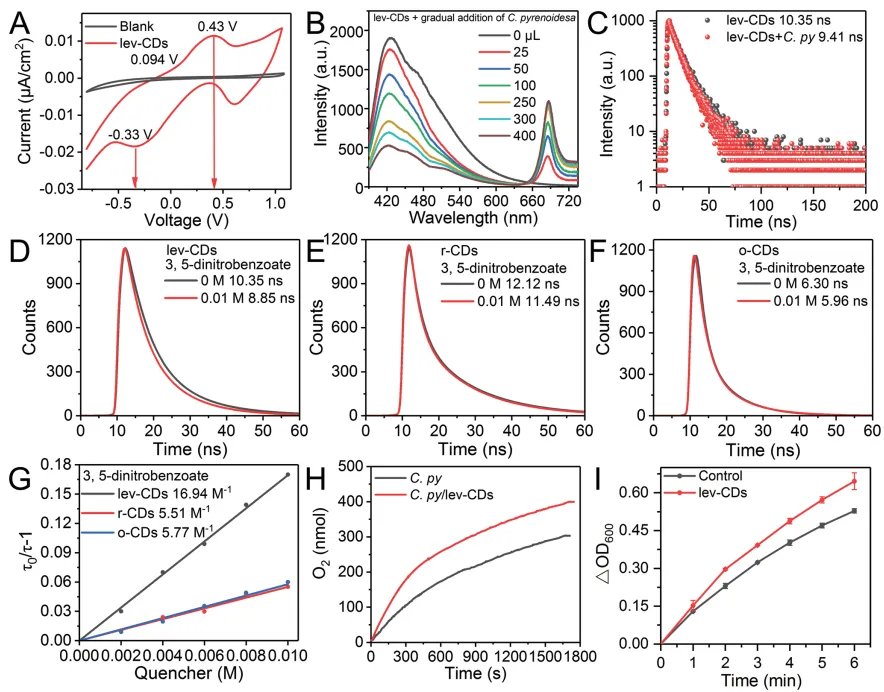
如上所述,吡啶氮是促进叶绿素积累的有效官能团,这对应于C.pyrenoidosa生物量的积累。作者假设lev-CDs作为电子供体,为C.pyrenoidosa的光系统提供电子。为了证明和更好地理解lev-CDs在电子转移过程中的作用,作者通过循环伏安法(CV)测试了lev-CDs的氧化还原电位(图5A)。根据公式(1),lev-CDs的氧化电位和还原电位分别为+0.6346和-0.1254 V(vs NHE)。如图1A所示,lev-CDs的氧化电位比P680的氧化电位更低,这表明P680+可以接受来自lev-CDs的电子,P680和P680* 之间的电位差减小,从而提高了从P680到P680* 的电子转移速率。同时,lev-CDs的还原电位比QA的还原电位更低, QA接受lev-CDs和P680* 的电子。因此,lev-CDs的光诱导电子可以转移到C.pyrenoidosa的电子传递链上。
此外,lev-CDs和逐渐添加C.pyrenoidosa的配合物的PL光谱显示(图5 B),lev-CDs在423 nm处的发射强度随着C.pyrenoidosa添加量的增加而降低,表明lev-CDs与C.pyrenoidosa组合后lev-CDs中电子-空穴对的重组效率较低。上述结果进一步表明,从lev-CDs到C.pyrenoidosa发生了光诱导电荷转移。同时,C.pyrenoidosa在680 nm左右的发射强度增加,这是由于C.pyrenoidosa数量的增加和lev-CDs向C.pyrenoidosa的能量转移的共同作用,lev-CDs与C. pyrenoidosa结合后荧光寿命减小,证实了lev-CDs向C.pyrenoidosa的能量转移 (图5C)。此外C.pyrenoidosa lev-CDs配合物中有较高的光电荷分离效率。为了进一步证实电子供体lev-CDs的作用,作者检测了lev-CDs,r-CDs和o-CDs的荧光衰减指标,加入3,5-二硝基苯甲酸后,lev-CDs、r-CDs和o-CDs的荧光寿命分别从10.35 ns降低至8.85ns、从12.12ns降低至11.49ns和从6.30ns降低至5.96ns(图5D-F)。淬灭的程度可以通过Stern-Volmer方程(方程(2))进一步描述。其中,τ0和τ分别表示不含和含3,5-二硝基苯甲酸酯的CDs的荧光寿命。[Q]是系统中3,5-二硝基苯甲酸盐的浓度。猝灭速率常数Ksv可以从Stern-Volmer图的斜率导出。
τ0/τ=1+Ksv[Q] (2)
PS Ⅱ的功能是为C.pyrenoidosa的光系统提供电子和传递能量。PSⅡ在光合作用的初始过程中起着关键作用,如图5H,由于lev-CDs处理,C.pyrenoidosa1700秒的氧释放增加了30%(从300.1至398.0 nmol),表明lev-CDs加速了水的分裂,其储存质子用于随后的ATP合成。为了进一步证实lev-CDs对PS II活性的促进作用,作者通过测量2,6-二氯酚-吲哚酚(DCPIP,一种人工电子受体,可以在叶绿体的光反应过程中捕获从PS II转移到PS I的电子)的还原速率来进行Hill反应,结果表明在25 mg L−1 lev-CDs处理下(图5I),叶绿体/lev-CDs复合物导致DCPIP减少的程度小于未处理的叶绿体,表明叶绿体的光合作用活性可以被lev-CDs促进。DCPIP的结果进一步证明了lev-CDs可以为PSⅡ产生电子,这可能是由于吡啶氮增加了光激发电子-空穴对的分离。
此外,还测定了C.pyrenoidosa和C.pyrenoidosa/lev-CDs复合体的叶绿素荧光参数。如图6所示,在0 ~ 1286 µmol m−2s−1的光合有效辐射(PAR)下,不同浓度的lev-CDs显著提高电子传递速率(ETR)、实际光合效率Y(Ⅱ)、最大光合效率(Fv/Fm)、光化学猝灭系数(qP),降低了非光化学猝灭系数(NPQ)。总的来说,与C.pyrenoidosa相比,由于lev-CDs提供并转移到光合电子传递链的电子,致使C.pyrenoidosa/lev-CDs复合物的ETR(图6A)和Y(Ⅱ)(图6 B)增加。同时,C.pyrenoidosa的Fv/ Fm在与25 mg L−1 lev-CDs孵育下达到最大值,从0.379到0.565(50%增量),这可归因于电子和叶绿素的同步增加(图6C)。作者还发现在25 mg L-1 lev-CDs处理下,C.pyrenoidosa的qP水平增加了52%(从0.270增加到0.411),证明了开放PSⅡ反应中心的比例增加(图6D)。此外,lev-CDs还能降低C.pyrenoidosa的NPQ,表明更多的光能被用于光合反应(图6 E)。综上所述,lev-CDs可以促进PSⅡ光合结构的运作效率,包括电子传递和能量利用。如图6 F所示,C.pyrenoidosa的ATP含量在用lev-CDs处理后增加。在光反应之后,lev-CDs的加入提高了Rubisco的羧化酶(卡尔文循环中重要酶)活性,并在25 mg L-1 lev-CDs的情况下达到最大值0.89 U g-1,比对照高53%(图6 F)。
总之,lev-CDs的吡啶氮提高了lev-CDs中电子-空穴对的分离效率,lev-CDs充当电子供体,并促进光诱导的电荷从lev-CDs转移到光合电子传递链中的氧化还原蛋白,从而改善光合作用。此外,lev-CDs还促进了叶绿素的合成,从而提高了PSⅡ对光能的利用和电子传递。
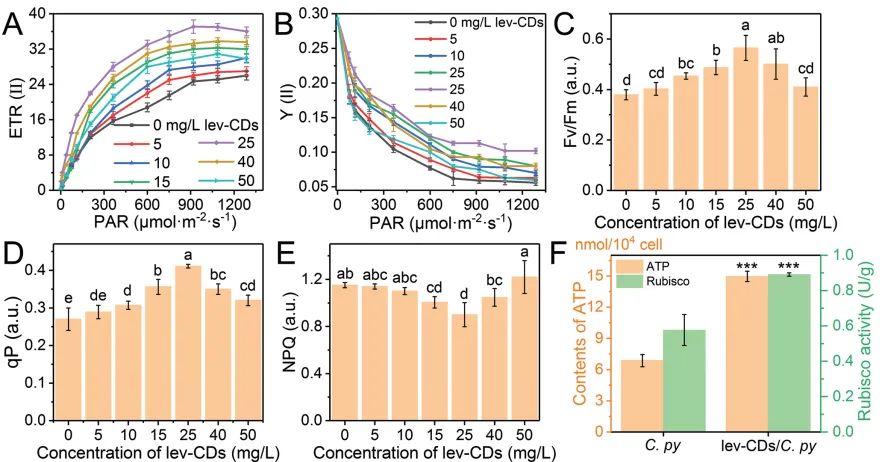
图6 A:ETR, B:Y(II),C: Fv/Fm, D:qP, E:NPQ,分别用不同浓度的lev-CDs(0、5、10、15、25、40和50 mg L−1)处理C. pyrenoidosa,F:用lev-CDs (25 mg L−1)处理C. pyrenoidosa和C. pyrenoidosa的ATP生物量及Rubisco活性
04
CDs对胞外电子转移的影响
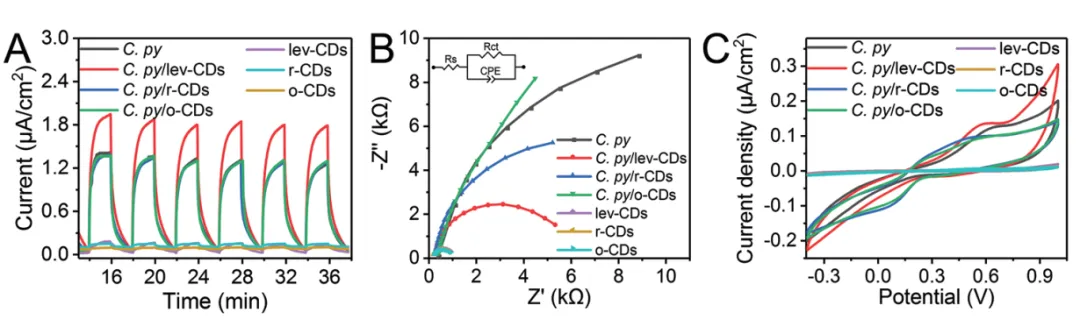
作为初级单细胞生物,C.pyrenoidosa不仅进行光合作用,还在细胞与外部环境之间进行电子通信。为了研究lev-CDs对C.pyrenoidosa胞外电子转移能力的影响,作者将C.pyrenoidosa和C.pyrenoidosa/CDs配合物分别放置在碳纸上,并以C. pyrenoidosa/CDs配合物作为工作电极构建三电极体系。测量了电极的光电流响应,并测试了lev-CDs、r-CDs和o-CDs电极作为对照。如图7A所示,由于光激发,levCDs、r-CDs和o-CDs电极提供了较小的光电流(照射下的电流密度减去暗电流密度)。C.pyrenoidosa电极产生的光电流为1.30±0.05µA cm−2,表明电子在C. pyrenoidosa和电极之间发生了转移。C.pyrenoidosa/lev-CDs电极的光电流为1.82±0.06µA cm−2,是C.pyrenoidosa电极的1.5倍。C.pyrenoidosa/r-CDs电极和C.pyrenoidosa /o-CDs电极的光电流分别为1.30±0.04µA cm−2和1.31±0.04µA cm−2,与C.pyrenoidosa电极没有太大差异。综上初步证明了lev-CDs显著提高了C.pyrenoidosa电极的光电响应性能。
C.pyrenoidosa、C.pyrenoidosa/lev-CDs、C.pyrenoidosa/r-CDs和C.pyrenoidosa/o-CDs电极能有效催化氧转化为水,其峰值对应于+0.6 v左右,对照组CDs、r-CDs和o-CDs电极无催化电流。因此,与其他电极相比,由于C.pyrenoidosa/lev-CDs配合物输出的电子促进了电子向碳纸的转移,所以C.pyrenoidosa/lev-CDs电极输出的电子将更多的铁(III)还原为铁(II)。
讨论与总结
本研究揭示了lev-CDs促进光合活性的机制。吡啶氮在提高生物量和叶绿素积累中起关键作用。lev-CDs作为电子供体将光诱导电子转移到P680+和QA+上,导致lev-CDs中电子-空穴对的重组效率较低,而光系统中的电子转移速率较高。此外,叶绿素荧光参数的增强和DCPIP速率的降低进一步证明了lev-CDs对PSII活性的促进作用。此外,氧进化和ATP、NADPH、NADP+合成增加,导致了卡尔文循环中Rubisco活性加速。
总之lev-CDs促进了C.pyrenoidosa与外界环境之间的光电化学通讯。其输出的电子可以进一步用于调节铁原子的氧化还原状态。本研究为通过纳米材料的表面工程来改善光合作用提供了一种参考策略。
END
推 荐 阅 读
1、活动丨植物胁迫九因子+非靶向代谢组+转录组套餐价1100元
2、合作文章丨中科院华南植物园曾宋君团队揭示外源赤霉素调控胼胝兜兰一梗双花的分子机理
3、活动丨土壤八项+非靶向代谢组+微生物组16S 检测(细菌)套餐价800元