当前位置:首页>农业>【文献速递】中国农业大学董江丽/王涛团队揭示VIK-APK-EDS1通路调控苜蓿抗疫霉根腐病新机制

【文献速递】中国农业大学董江丽/王涛团队揭示VIK-APK-EDS1通路调控苜蓿抗疫霉根腐病新机制

  • 2026-10-27 11:02:16
【文献速递】中国农业大学董江丽/王涛团队揭示VIK-APK-EDS1通路调控苜蓿抗疫霉根腐病新机制

点击蓝字,关注我们

2025年7月,中国农业大学生物学院董江丽/王涛教授团队在The Plant Cell期刊发表了题为“Regulation of the immunity-related VIK–APK–EDS1 pathway in Medicago for resistance to Phytophthora”的研究论文。该研究在蒺藜苜蓿(Medicago truncatula)中发现了一条由MtVIK-MtAPK-MtEDS1组成的信号通路在苜蓿疫霉感染过程中起关键作用,其中MtVIK是蒺藜苜蓿免疫的负调节因子,具有增强作物持久抗性的巨大潜力。

研究背景

疫霉菌(Phytophthora)引起的病害对全球农业生产、生态和粮食安全构成重大威胁。它是一类卵菌,常被称为“假真菌”,具有遗传多样性高、变异快的特点,给田间防控带来巨大挑战。苜蓿是全球最重要的多年生牧草之一,号称“牧草之王”。疫霉根腐病是导致苜蓿减产的主要病害之一,感病品种产量损失最高可达68%。目前过度依赖化学杀菌剂防治疫霉菌会带来环境、健康和经济问题。因此,利用遗传改良和分子育种培育抗病新品种,是控制该病害最经济、有效且可持续的策略,也是未来牧草产业发展的必经之路。本研究旨在深入挖掘苜蓿疫霉菌介导的蒺藜苜蓿抗病分子机制,并将其服务于培育优良抗病苜蓿品种。

研究结果

01

蒺藜苜蓿Mtapk突变体中防御反应

相关基因表达上调

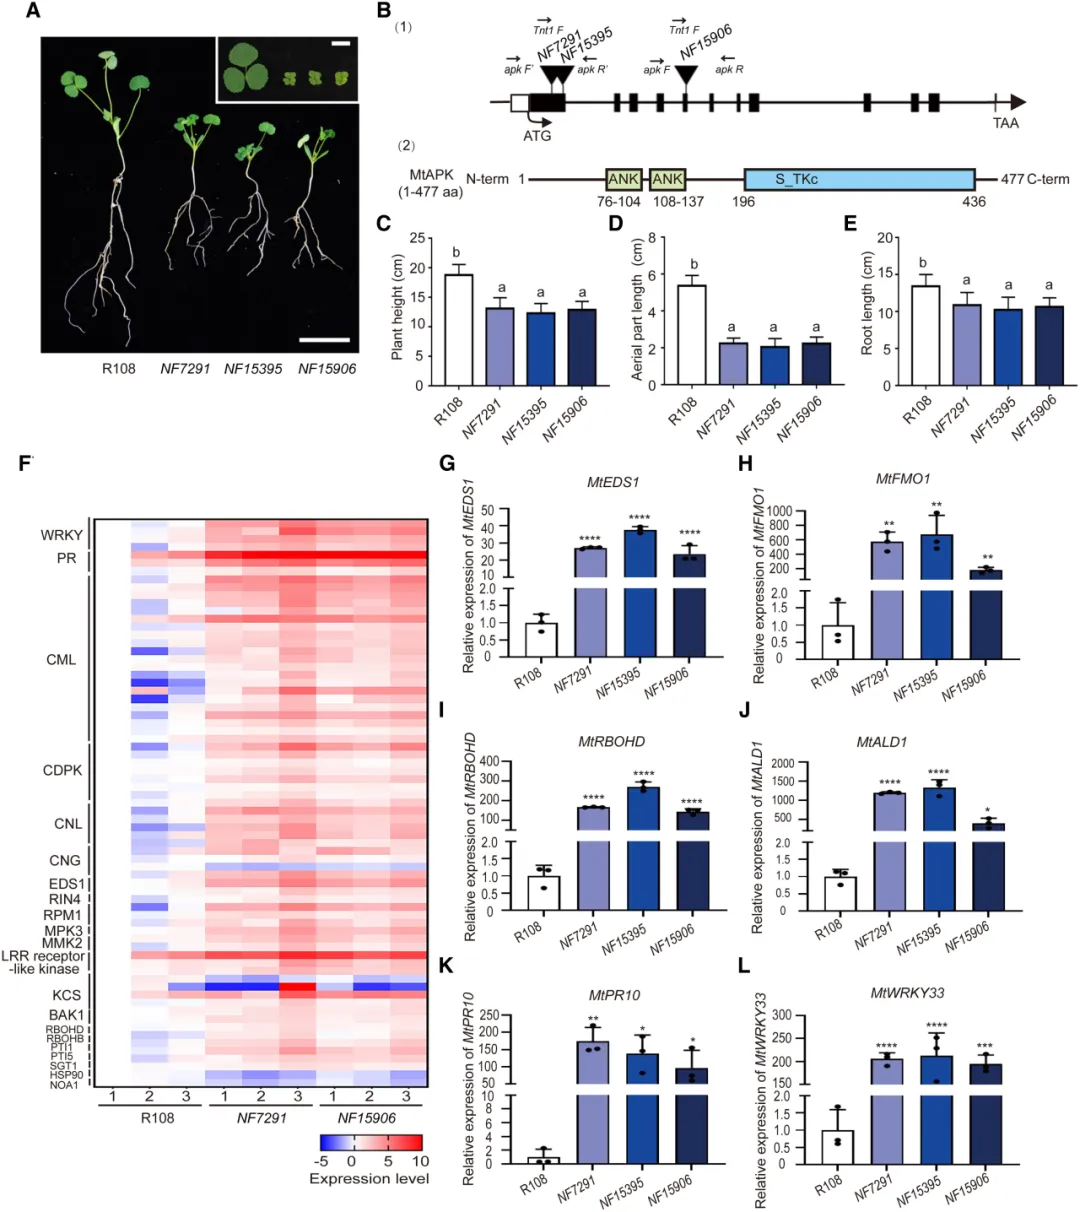
在蒺藜苜蓿突变体库中鉴定了一个卷叶、矮化、无核的突变体NF15906,通过TAIL-PCR技术发现,锚蛋白激酶(MtAPK)编码基因的Tnt1反转录转座子插入可能与NF15906突变体表型相关。此外,根据其编码序列,在突变体库中又筛选到另外2个Mtapk基因突变系NF7291和NF15395(图1A)。其中NF7291和NF15395的Tnt1插入到MtAPK的第一外显子区域,而NF15906的Tnt1插入到MtAPK的第5外显子(图1B)。3个突变体均表现出生长发育不良的表型:株高、地上部长和根长均显著短于野生型R108(图1C-E)。

为确定Mtapk突变影响了哪些通路,对R108、NF7291和NF15906进行转录组测序。结果发现,这些基因广泛参与免疫反应过程,涵盖WRKY转录因子、病程相关基因、钙离子信号、抗病蛋白、EDS1、MAPK级联系统等多种免疫相关组分(图1F)。qRT‒PCR表明MtEDS1、MtFMO1、MtRBOHD、MtALD1、MtPR10和MtWRKY33等免疫相关基因在Mtapk突变体中显著上调(图1G-L),表明MtAPK是植物免疫负调控因子。

图1 未接种病原菌条件下Mtapk突变导致生长缺陷并上调防御反应基因表达

02

MtEDS1基因敲除可完全抑制

Mtapk突变体的自身免疫

植物病原相关分子模式触发免疫过程中和效应因子触发免疫过程中往往会涉及到植物抗病蛋白发生突变,从而诱发植物自发性免疫反应。前人研究显示mpk4突变体的自身免疫依赖于EDS1,然而MtEDS1在蒺藜苜蓿中的功能尚未被阐明。

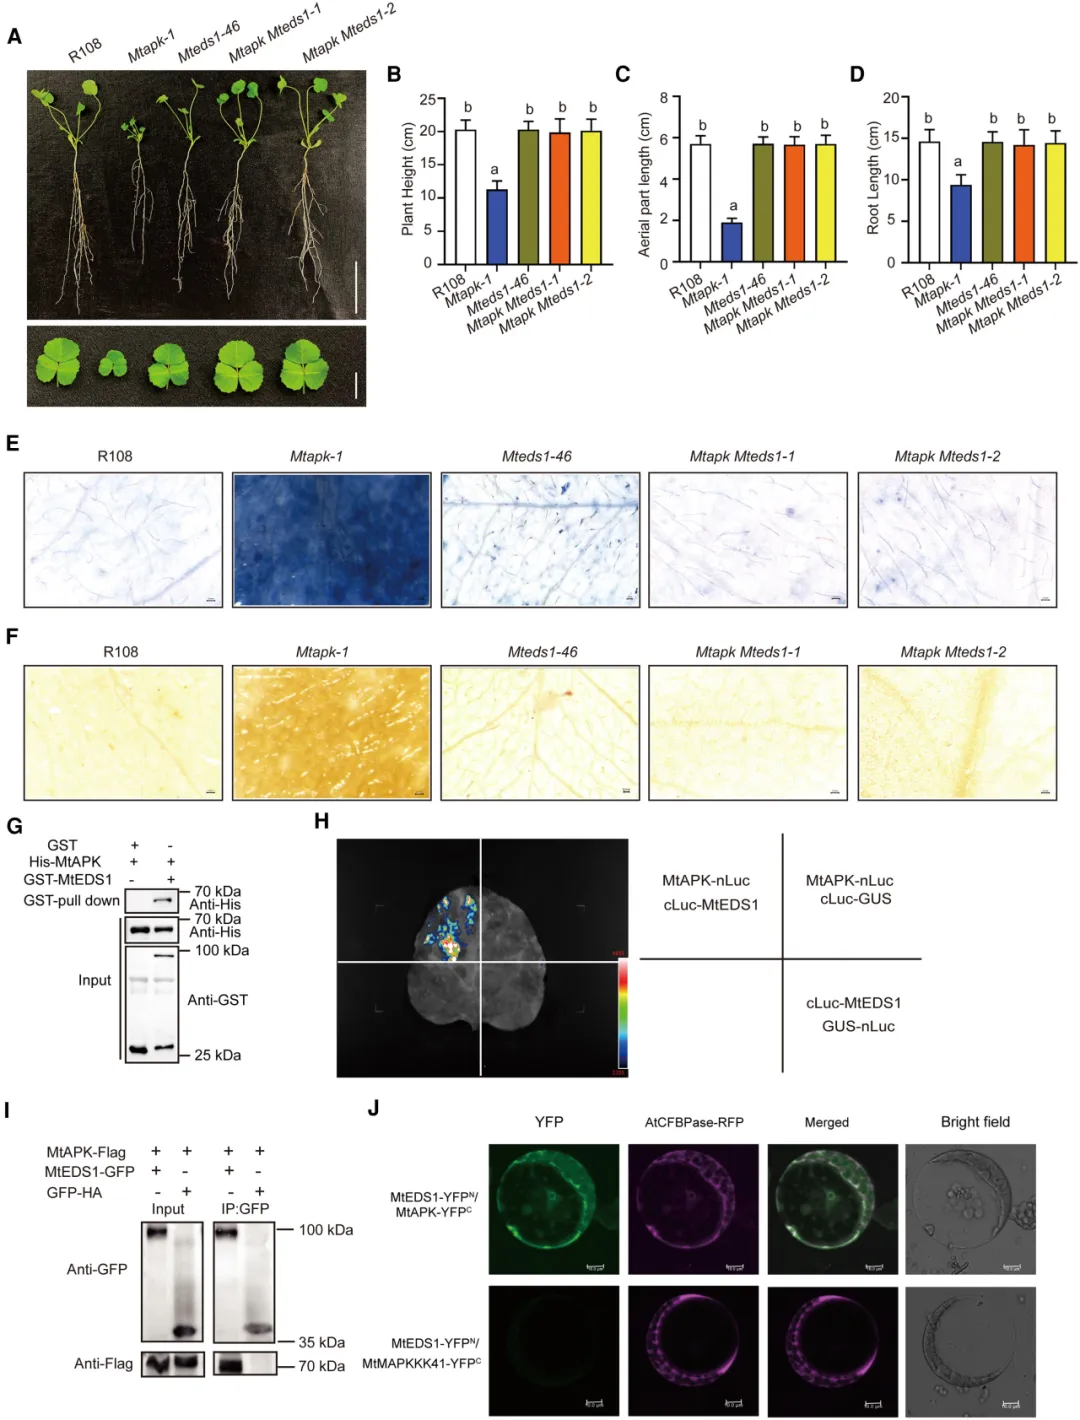
为确定Mtapk突变体的自身免疫是否依赖MtEDS1,利用CRISPR/Cas9基因编辑技术获得了3个独立Mteds1单突变株系(Mteds1-16、Mteds1-23和Mteds1-46),以及2个Mtapk/Mteds1双突变系(Mtapk/Mteds1-1和Mtapk/Mteds1-2)。在正常生长条件下,对野生型R108、Mtapk和Mteds1单突变体以及Mtapk/Mteds1双突变体的株高、地上部长和根长进行了测定,结果表明,Mtapk/Mteds1双突变体与R108之间没有显著的表型差异(图2A-D)。因此,Mteds1突变完全补偿了Mtapk突变体的缺陷生长,说明MtAPK作用于MtEDS1上游。台盼蓝和DAB染色进一步表明Mtapk自身免疫依赖于MtEDS1(图2E-F)。通过GST Pull-down试验、荧光素酶互补成像(LCI)和共免疫沉淀(Co-IP)试验进一步验证了MtAPK和MtEDS1之间存在相互作用(图2G-I)。双分子荧光互补(BiFC)试验结果表明,MtEDS1与MtAPK之间的相互作用主要发生在细胞质中(图2G-I)。

图2 敲除MtEDS1完全抑制了Mtapk突变体的自身免疫

03

MtVIK位于MtAPK上游

为探究APK-EDS1是如何参与免疫的,通过酵母双杂交(Y2H)文库筛选来确定MtAPK的潜在互作蛋白,共获得26个候选蛋白。从其中鉴定出一种双酶SPLA样蛋白,其氨基酸序列与马铃薯StVIK蛋白的同源性为79.08%,因此命名为MtVIK。

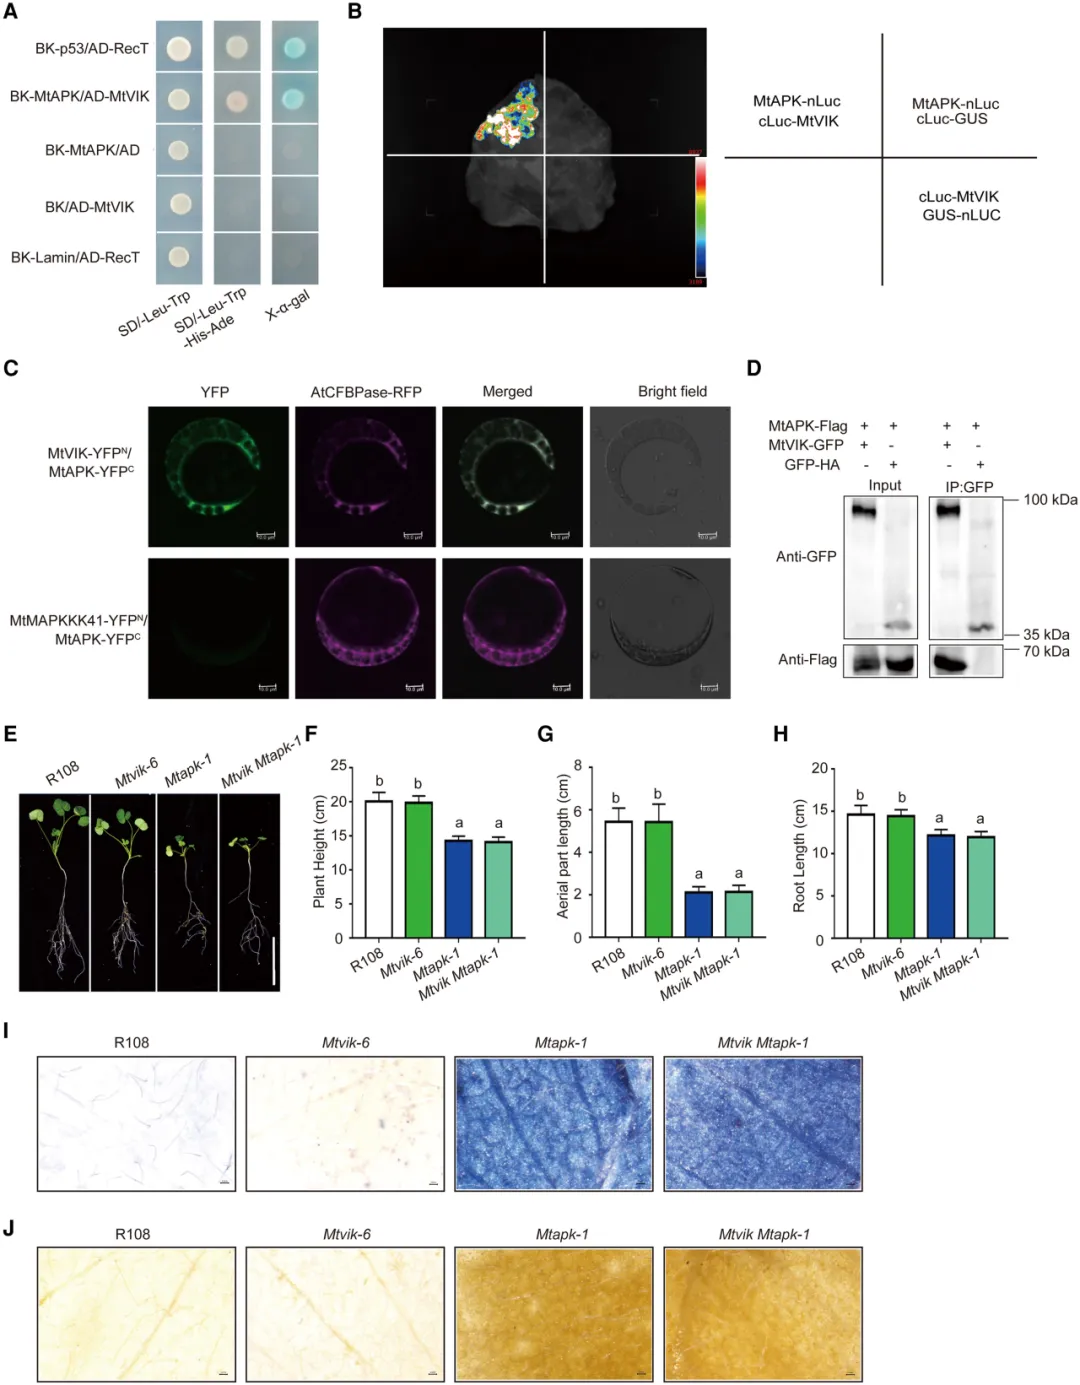
Y2H、LCI和BiFC分析表明MtVIK与MtAPK两种蛋白在细胞质中相互作用(图3A-C)。通过毛状根转化将VIK-GFP或GFP-HA转化到ProMtAPK:MtAPK-FLAG转基因植株中并进行Co-IP检测,结果也证实了MtVIK与MtAPK相互作用(图3D)。以R108为遗传背景,通过CRISPR/Cas9技术构建Mtvik突变体,获得3个单突变株Mtvik-6、Mtvik-16和Mtvik-21,以及Mtvik/Mapk双突变体。在正常生长条件下测定其株高、地上部长和根长,结果表明,Mtvik/Mapk双突变体与Mapk单突变体之间没有显著差异,但Mtvik/Mapk双突变体与野生型R108之间有显著差异(图3E-H)。台盼蓝染色显示,Mtvik/Mtapk双突变体和Mtapk单突变体比R108表现出更严重的细胞坏死(图3I)。DAB染色结果表明,与R108相比,Mtvik/Mapk双突变体和Mapk突变体在成熟叶片中积累了更高水平的过氧化氢(图3J)。这些结果表明,MtVIK基因位于MtAPK上游。

图3 遗传证据表明MtVIK位于MtAPK上游

04

MtVIK是一种对苜蓿疫霉菌侵染的

负调节因子

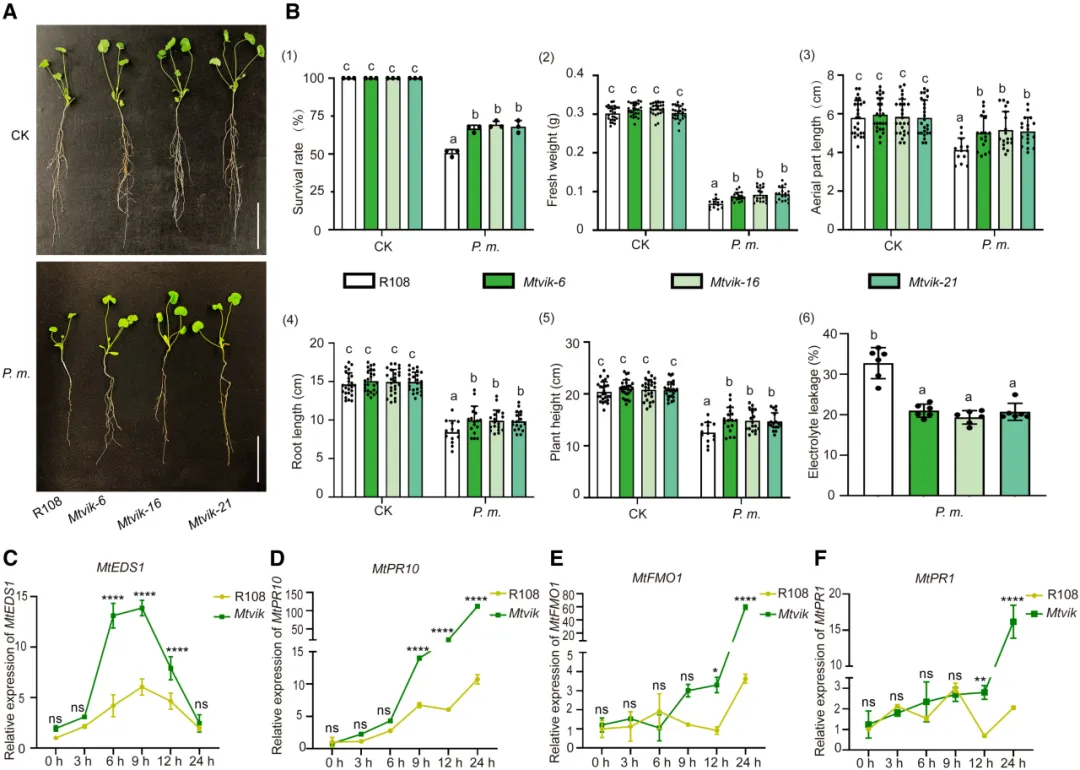
由于马铃薯MAPKKK蛋白StVIK是致病疫霉(Phytophthora infestans)促进病害所必需的,因此猜测MtVIK同样可能与苜蓿疫霉菌侵染有关。通过敲除MtVIK基因来验证其功能,结果显示Mtvik突变体与R108生长性状相似(图4A-B)。接种疫霉菌后,Mtvik突变体存活率、鲜重、株高、地上部长和根长均显著大于野生型R108(图4A-B)。这些结果表明,Mtvik突变体比野生型R108对苜蓿疫霉菌具有更强的抗性。此外,由接种苜蓿疫霉菌诱导的抗性相关基因MtEDS1、MtPR1、MtPR10和MtFMO1在Mtvik突变体中的表达水平高于野生型R108(图4C-F)。因此,Mtvik突变株比野生型R108对苜蓿疫霉菌的抗性更强。

图4 MtVIK是苜蓿疫霉菌感染的负调节因子

05

苜蓿疫霉菌感染触发苜蓿VIK蛋白

磷酸化APK从而降低植物免疫

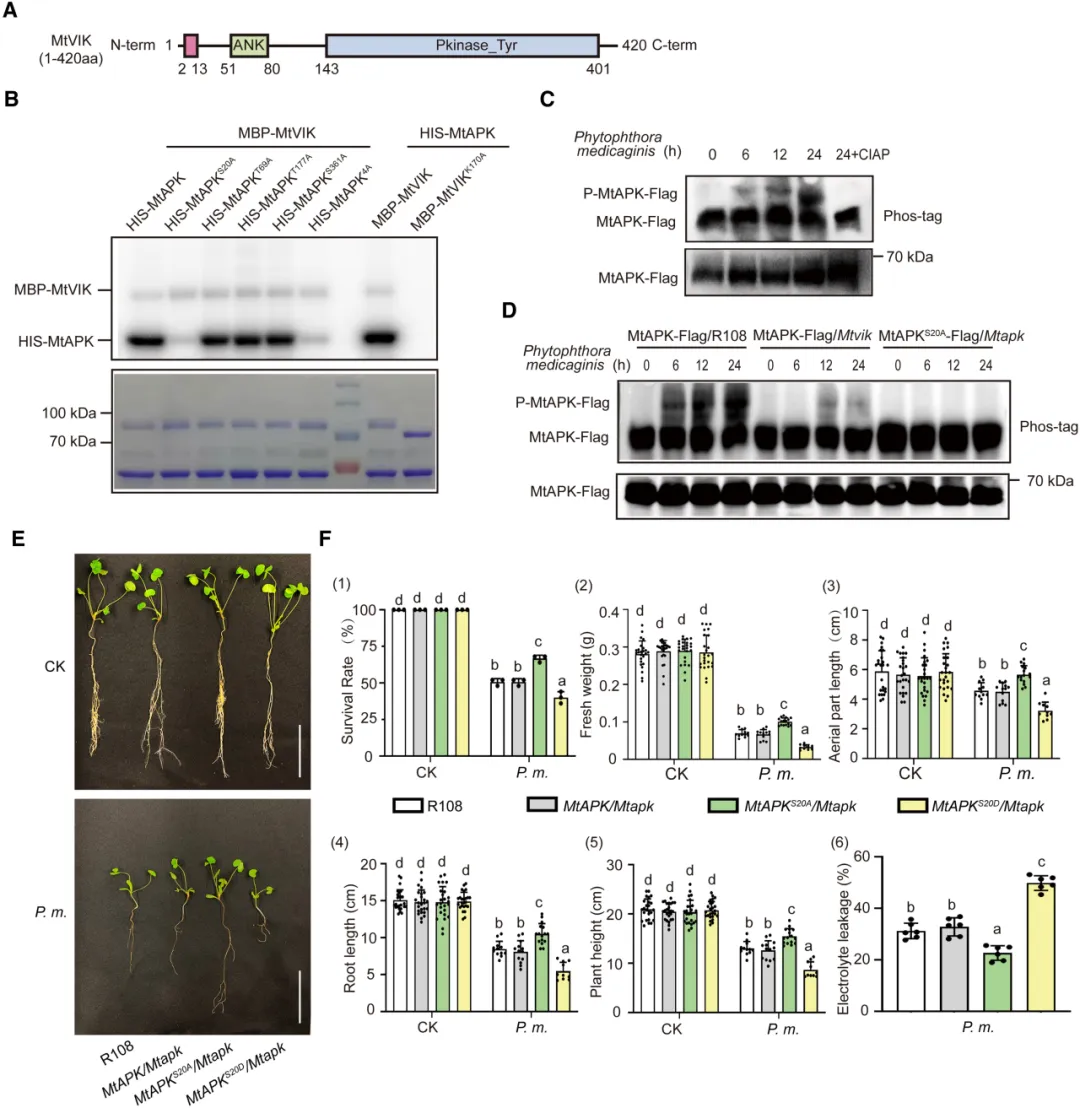
VIK是一种具有激酶活性的MAPKKK,因此MtVIK可能通过磷酸化下游目标蛋白,传递并放大刺激特异性信号到细胞中发挥磷酸化作用。MtVIK蛋白包含一个串联的Kyrin结构域和一个Pkinase Tyr结构域(图5A)。用丙氨酸(Ala)取代MtAPK的苏氨酸(Thr)和丝氨酸(Ser)残基产生磷酸化缺陷突变体。当Ser 20突变为Ala时,MtVIK对MtAPK的磷酸化作用失活。用Ala取代MtVIK的赖氨酸(Lys)残基,产生激酶死亡突变体(MBP-MtVIKK170A)。以未突变形式MBP-MtVIK作为对照进行体外磷酸化试验,结果表明,当MtVIK失去激酶活性时不能磷酸化MtAPK(图5B)。

在Mtapk突变体中构建MtAPK自身启动子驱动的APK-FLAG回补植株(ProMtAPK:APK-FLAG/Mtapk),并检测其接种苜蓿疫霉菌前后MtAPK的磷酸化状态。Phos-Tag分析表明,MtAPK磷酸化水平的增加与接种时间的延长有关,用CIAP(小牛肠道碱性磷酸酶)处理后,磷酸化条带消失(图5C)。分别以野生型R108和Mtvik突变体为遗传背景获得表达MtAPK-Flag的转基因毛状根,与R108相比,Mtvik突变株的MtAPK磷酸化水平显著降低,与病原菌诱导MtVIK磷酸化MtAPK一致。以Mtapk突变体为遗传背景构建MtAPKS20A-Flag转基因毛状根(MtAPKS20A/Mtapk,将MtAPK第20位丝氨酸突变为丙氨酸),并观察到接种苜蓿疫霉菌后MtAPK磷酸化水平显著降低(图5D)。这些结果表明,MtVIK对MtAPKS20的磷酸化在抗苜蓿疫霉菌中起重要作用。此外,MtAPKS20A/Mtapk植株在接种苜蓿疫霉菌后各项生理指标(包括存活率、鲜重、地上部分长度、根长、株高和离子渗透率)显示,与野生型R108和MtAPKS20D/Mtapk(以Mtapk突变体为遗传背景构建MtAPKS20D-Flag转基因毛状根,将MtAPK第20位丝氨酸突变为天冬氨酸)相比,其抗性显著增强(图5E-F),说明MtAPKS20磷酸化有利于苜蓿疫霉菌感染。这些结果表明,苜蓿疫霉菌通过感染触发VIK磷酸化APK的Ser20来降低植物免疫。
图5 MtVIK对MtAPKS20的磷酸化有利于苜蓿疫霉菌侵染

06

MtVIK使MtAPK磷酸化并限制

MtEDS1在细胞核中的功能

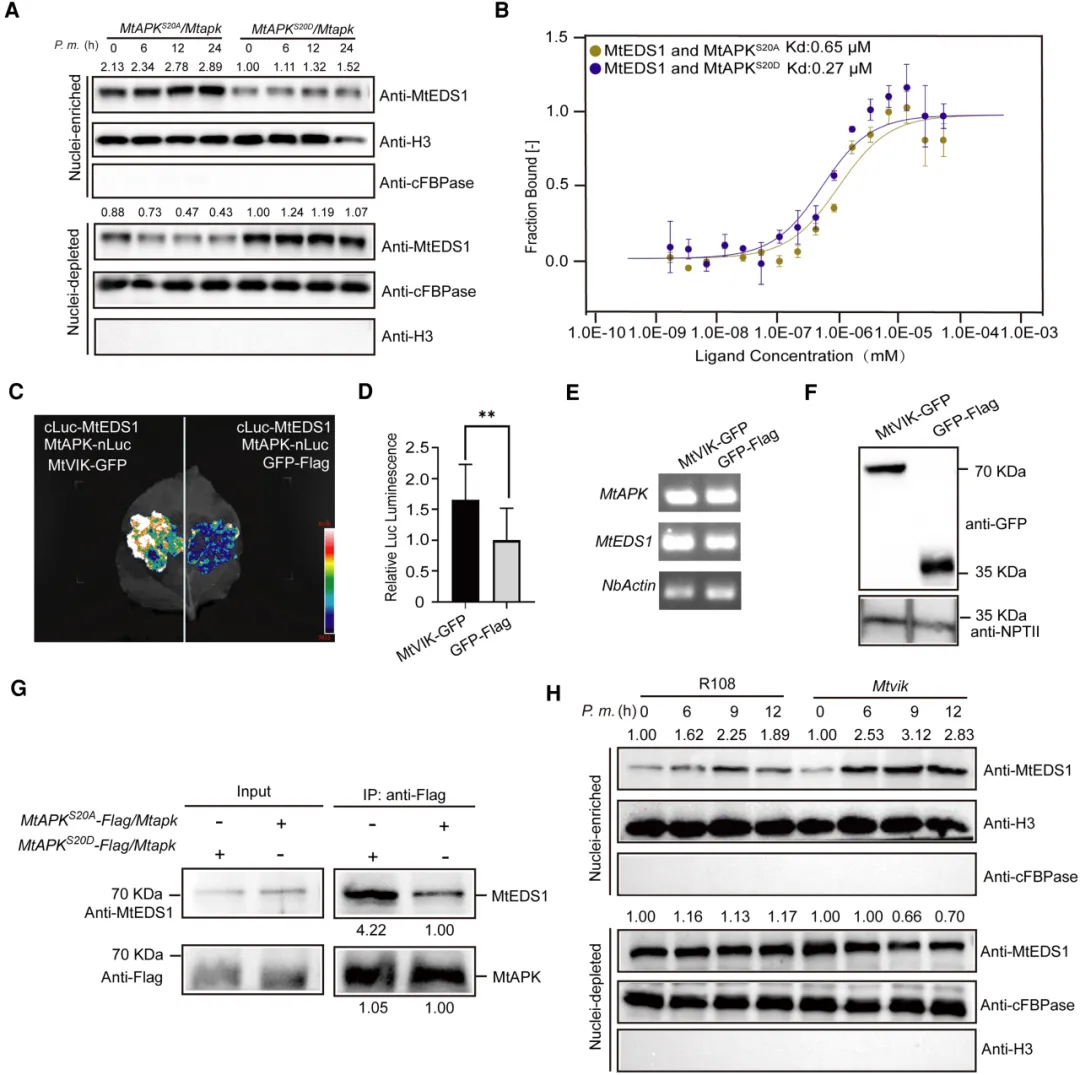
为评估MtAPKS20磷酸化对EDS1的具体影响,本研究进一步探究了MtEDS1的核质穿梭过程。结果表明,ProMtAPK:APKS20D/Mtapk植株中去细胞核的MtEDS1蛋白水平显著高于ProMtAPK:APKS20A/Mtapk(图6A),推测MtVIK对MtAPK的磷酸化改变了MtEDS1的核质分布,从而限制了MtEDS1在细胞核中的作用。以微量热电泳法(MST)验证假设,结果证实,MtEDS1与MtAPKS20D结合具有更高的亲和力(图6B)。LCI实验进一步验证了这一推测(图6C-F)。利用MtAPKS20A-Flag/Mtapk和MtAPKS20D-Flag/Mtapk突变株系的定量Co-IP实验,观察到MtAPKS20D与MtEDS1的相互作用强于MtAPKS20A(图6G)。

基于以上结果,本研究猜测Mtapk突变后干扰了MtEDS1蛋白在细胞中的分布进而影响苜蓿对疫霉菌抵抗能力。通过检测野生型R108和Mtvik突变体在细胞核和细胞浆中的MtEDS1蛋白水平,发现经细胞核分离后,Mtvik突变体的核MtEDS1蛋白水平较R108突变体显著增加(图6H)。综上所述,MtVIK对MtAPK的磷酸化增强了它与细胞质中MtEDS1的相互作用,从而影响MtEDS1从细胞质到细胞核的穿梭,限制了EDS1的核抗性,并抑制免疫反应。

图6 MtVIK使MtAPK磷酸化并限制MtEDS1在细胞核中的作用

07

CRISPR-Cas9编辑MtVIK用于培

育抗病紫花苜蓿而不影响生长或产量

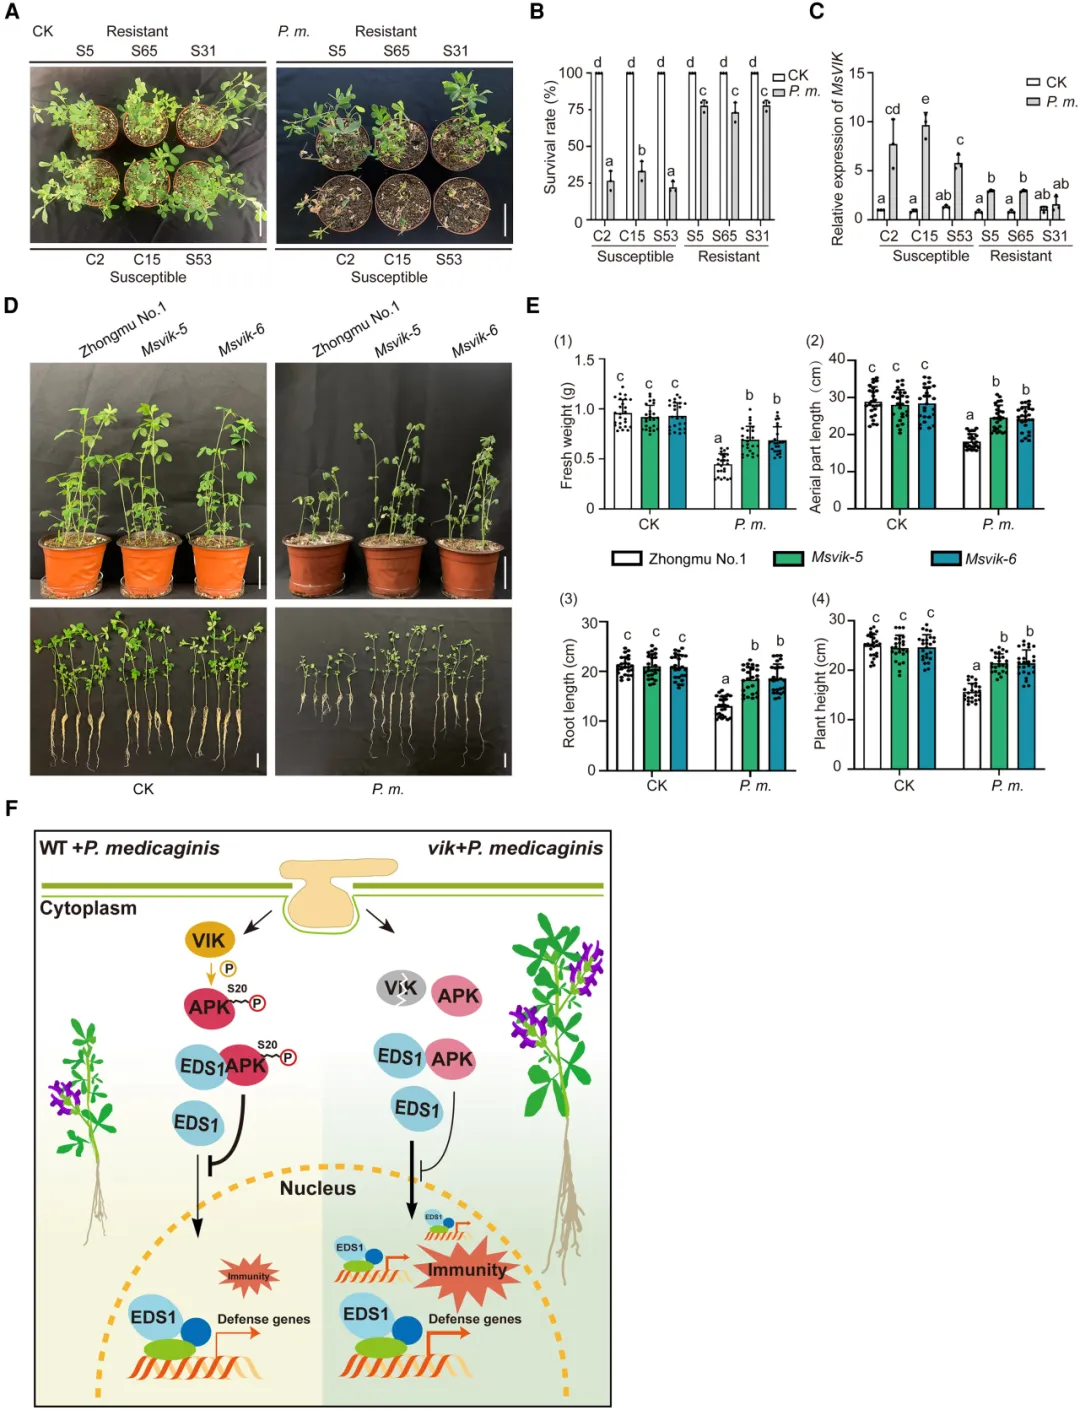
在上述结果中证明了Mtvik突变体植株有更强的抗病能力。为探究这项结果的实际应用潜力,本研究从紫花苜蓿(Medicago sativa)核心种质库中鉴定出一些高抗植株材料(S5、S65和S31)和易感病材料(C2、C15和S53)。接种药用疫霉后,紫花苜蓿高抗材料存活率在70%-80%之间,而易感病材料存活率在20%-32%之间(图7A-B)。qRT-PCR结果表明,接种前MsVIK在所有材料中的表达水平是一致的,而接种后MsVIK在感病材料中的表达水平显著高于高抗材料(图7C),说明以MsVIK低表达为特征的种质可能是紫花苜蓿抗病育种的首选材料。通过CRISPR/Cas9基因编辑技术,以‘中牧1号’品种为遗传背景构建Msvik突变体,获得两个株系Msvik-5和Msvik-6。在未接种苜蓿疫霉菌的情况下,Msvik突变体与野生型生长性状相似(图7D-E)。然而在接种苜蓿疫霉菌后,与野生型相比,Msvik突变体表现出鲜重、地上部分长度、根长和株高的增加(图7D-E)。这些结果表明,MsVIK基因敲除可以在不影响生长和产量的情况下有效地保护苜蓿对疫霉菌的抗性。

图7 MsVIK可作为培育抗病品种的目标基因

总结和讨论

本研究首次阐明VIK-APK-EDS1通路在苜蓿免疫调控中的分子机制,揭示了病原菌通过调控宿主磷酸化修饰来抑制免疫的分子策略。MsVIK作为关键的负调控因子,是培育抗病作物的理想靶点。通过基因编辑技术调控该通路,可在不牺牲作物农艺性状的前提下,实现对苜蓿疫霉菌的持久抗性。该研究不仅深化了对植物-病原菌互作机制的理解,也为通过精准基因编辑培育抗病、高产作物品种提供了重要理论依据和技术路径。

原文链接:https://doi.org/10.1093/plcell/koaf161

iflowers平台聚焦花卉科技前沿文献解读,花卉科普实践宣传,促进科研素养提升和拔尖创新人才培养,诚挚地欢迎各界人士踊跃投稿!

投稿题材涵盖:花卉科普、花文化探讨、文献解读等。

投稿方式如下:

请将稿件发送至邮箱liangxia6@bjfu.edu.cn,并在邮件主题中注明稿件类型及您的姓名,以便我们及时处理。

END

作者:刘博达

排版:黄梓高

审核:梁夏、郑唐春

相关推荐:

【文献速递】广西大学在现代甘蔗品种全基因组SSR分子标记开发方面取得进展

【文献速递】上海师范大学张辉教授团队利用基因编辑技术创制重瓣矮牵牛

【文献速递】南京农业大学揭示光周期相关NAC家族基因PmNAC32促进梅花成花诱导机制

点击下方“阅读原文”查看文章原文

点击“在看”和“点赞”,助力传播 

最新文章

随机文章