当前位置:首页>农业>当期论文 | 吉林农业大学林宇杰,王宁宁等:碱胁迫下水稻离子通道和转录因子相关基因的表达研究

当期论文 | 吉林农业大学林宇杰,王宁宁等:碱胁迫下水稻离子通道和转录因子相关基因的表达研究

  • 2026-10-16 18:11:43
当期论文 | 吉林农业大学林宇杰,王宁宁等:碱胁迫下水稻离子通道和转录因子相关基因的表达研究

吉林农业大学学报

第6期

第47卷

第47卷

作者及单位

林宇杰1,吴 楠1,邢又今1,2,王宁宁

1. 吉林农业大学农学院,长春130118;2. 长春新区教育局,长春130102

基金信息

吉林省教育厅科学技术研究项目(JJKH20220350KJ)

摘要&关键词

摘要:通过对“东稻4号”进行37.5 mmol/L(pH 11.5)混合碱(Na2CO3∶NaHCO3=9∶1)溶液胁迫,观察表型变异情况,并选定处理4 d的植株根系组织进行qRT-PCR试验,检测相关基因的表达情况。结果表明:碱胁迫下水稻表现出植株逐渐干枯发黄、株高降低、叶片卷曲、根系生长受限、植株鲜质量降低,并且部分与根系发育相关的基因被碱胁迫抑制;离子通道和转录因子相关基因的表达发生改变,还发现位于液泡膜上的离子通道相关基因OsNHX1、OsNHX2、OsTPKa在碱胁迫下,对稳定细胞质中离子平衡发挥至关重要的作用且被诱导表达;同时在高pH碱胁迫下,转录因子活性相关基因OsJAMyb、OsNAC2、OsNAP、OsBZ8、Oshox22也被显著诱导。这些基因可能是碱胁迫下水稻根系响应外界环境刺激过程中的重要基因。碱胁迫环境下,水稻根系接受胁迫信号并启动一系列的响应措施,包括Na+、K+的平衡和抗性相关基因的表达,其中离子通道和转录因子是调控胁迫响应的关键,因此研究碱胁迫下水稻根系离子通道和转录因子相关基因的表达具有重要意义。

关键词:水稻;碱胁迫;离子通道;转录因子

精要导读

水稻是世界上重要的粮食作物,尤其在其发源地——亚洲地区。近年来,我国的稻米产业发展良好,产量多年位于世界第一。水稻属于禾本科植物,圆锥形花序、颖果、叶片细长,基因组较小且与其他主要的禾本作物存在共线性,因此对水稻功能基因组研究已成为植物生物学领域的热点[1]。目前,水稻及其他作物在生产上均存在一个严重的限制因素,即土壤盐碱化。

盐碱地是土壤盐碱化的一种类型,在世界上广泛分布,约占陆地总面积的7%。在我国,土壤盐碱化问题也是同样严重,盐碱地面积约为9 913万hm2,约占国土面积的10%,是制约经济、社会、生态可持续发展和农业发展的重要因素[2]。在盐碱胁迫下,土壤中高浓度的Na+会破坏植株根系细胞内外离子平衡,从而对植株产生一系列的影响,如离子毒害、代谢紊乱等[3]。面对这种不良环境时,植物调节细胞内的K+和Na+比例,以减轻Na+毒害,其中多种离子通道蛋白发挥重要作用[4]。植物在胁迫环境中生长时,细胞外的胁迫信号被细胞的感受器捕获,从而转化为钙离子信号,细胞的SOS能够接受钙信号,将细胞质中的Na+向细胞外排出;同时激活液泡膜上的NHX1,使细胞质中积累的Na+被隔离到液泡中,以此保持细胞质中的离子平衡[5]。此外,细胞中K+的浓度能够调节渗透压、维持离子平衡、稳定多种生理生化过程,并且K+在各种非生物胁迫中起到缓解作用[6]。在盐碱胁迫下,大量的Na+内流导致膜电位过低,从而激活K+流出通道并破坏细胞膜,为了应对这些胁迫,植株通过调节K+通道蛋白(HKT、HAK、AKT等)的活性,进而增强细胞外K+的吸收。此外,细胞膜质子泵(H+-ATP酶)的活性也是影响K+吸收的另一限制因素[7]。总之,离子通道活性是影响植株细胞内K+、Na+平衡的重要因素之一,相关基因的研究对探究植物抗盐碱机制具有重要意义。

此外,植物受到环境胁迫时,膜受体感知信号后,改变细胞质中Ca2+水平,产生包括活性氧以及ABA等次级激素信号,这些信号分子通过MAPK、CDPK等激酶进一步激活各类转录因子,从而调节各种胁迫响应基因的转录,最终产生抵抗胁迫和伤害修复的能力[8-9]。其中,转录因子发挥了承上启下的枢纽作用,且参与植物生长和发育。因此明确各转录因子在植物生长发育或响应胁迫中的作用至关重要。目前研究表明,MYB、AP2/ERF、bZIP等转录因子[10-14]在上述过程中发挥重要功能。

已有研究表明,植物对盐胁迫的响应机制包括离子平衡、渗透调节、解毒(即伤害控制和修复)以及生长调节[15],近40年来,耐盐性一直是研究工作中的热点问题,但对于植物的耐碱性研究相对较少,植物的耐碱机制仍所知较少[16]。盐碱胁迫分为盐胁迫(NaCl、Na2SO4)和碱胁迫(Na2CO3、NaHCO3),均可以对植物产生渗透胁迫和离子毒害,进而影响植物的生长。与盐胁迫不同的是,由于碱胁迫是高pH影响,植物会受到盐和高pH的双重胁迫,损伤程度通常比盐胁迫更加严重和复杂,而且植物对2种胁迫的响应机制也存在差异[16-18]。扈艳萍[19]对粳稻幼苗进行不同浓度NaCl(0,50,100,150 mmol/L)和Na2CO3(0,5,10,15 mmol/L)胁迫,结果显示:盐碱胁迫均会导致水稻生物量降低、植株Na+浓度增加、气孔变小,且随着胁迫加剧,变化的幅度增大;比较盐胁迫和碱胁迫后发现,15 mmol/L的碱胁迫对水稻的影响程度与150 mmol/L的盐胁迫相似,甚至更严重。路旭平等[20]通过不同浓度Na2CO3和NaHCO3的混合碱(0,10,20,30 mmol/L)对水稻进行胁迫试验,结果显示:碱胁迫下根系活力、总长、表面积等指标均降低。植株暴露在碱性环境下时,根系直接接触到不良条件,就会影响其生长发育,即破坏细胞壁、改变细胞内pH稳定性、影响离子平衡、有机酸及活性氧的水平等,并且根系附近的高pH会影响金属离子和磷等营养元素的沉淀,进一步影响根系对营养物质的吸收[16],进而影响植株的正常生长发育。因此,对碱胁迫下水稻根系形态、离子通道和转录因子活性相关基因表达的研究有重要的指导意义。

本研究选取抗逆性较好的水稻栽培型品种“东稻4号”[21],其具有耐盐碱、高产、优质、抗病的综合表现,已经在吉林省西部稻作区推广多年。前人研究发现,盐胁迫下“东稻4号”能够通过对脯氨酸、可溶性糖等小分子化合物的积累,来调节渗透压和增加CAT等氧化酶的活性,缓解氧化胁迫带来的损伤[22]。在盐碱混合胁迫下,该品种参与次生代谢物生物合成、氨基酸生物合成、铁稳态以及二萜和苯丙烷生物合成途径中基因的表达可能是其适应盐碱胁迫的重要因素[23]。Lü等[24]对“东稻4号”进行不同浓度Na2CO3(0,5,10,20,30,40,50 mmol/L)胁迫10 d,结果显示:在浓度≤30 mmol/L的碱胁迫条件下,植物会产生不同程度的表型变异,但未导致植物死亡;而40 mmol/L碱胁迫时植株几乎完全枯死。同时研究还发现,碱胁迫显著抑制了水稻的生物量、总根长、根数等指标;在碱性条件下脯氨酸大量积累。但是,目前高pH的碱胁迫影响“东稻4号”机制的研究尚不明确。在已有的研究基础上,本研究选用37.5 mmol/L(pH 11.5)混合碱对“东稻4号”进行胁迫处理,通过观察表型变异情况、测量性状数据,并测定根系相关基因的表达,探究高程度碱胁迫下其根系的响应机制以及确定在碱胁迫下发挥作用的离子通道和转录因子相关基因,初步探究“东稻4号”适应较高程度碱胁迫的分子机理。

结果与分析

1

碱胁迫对植株表型的影响

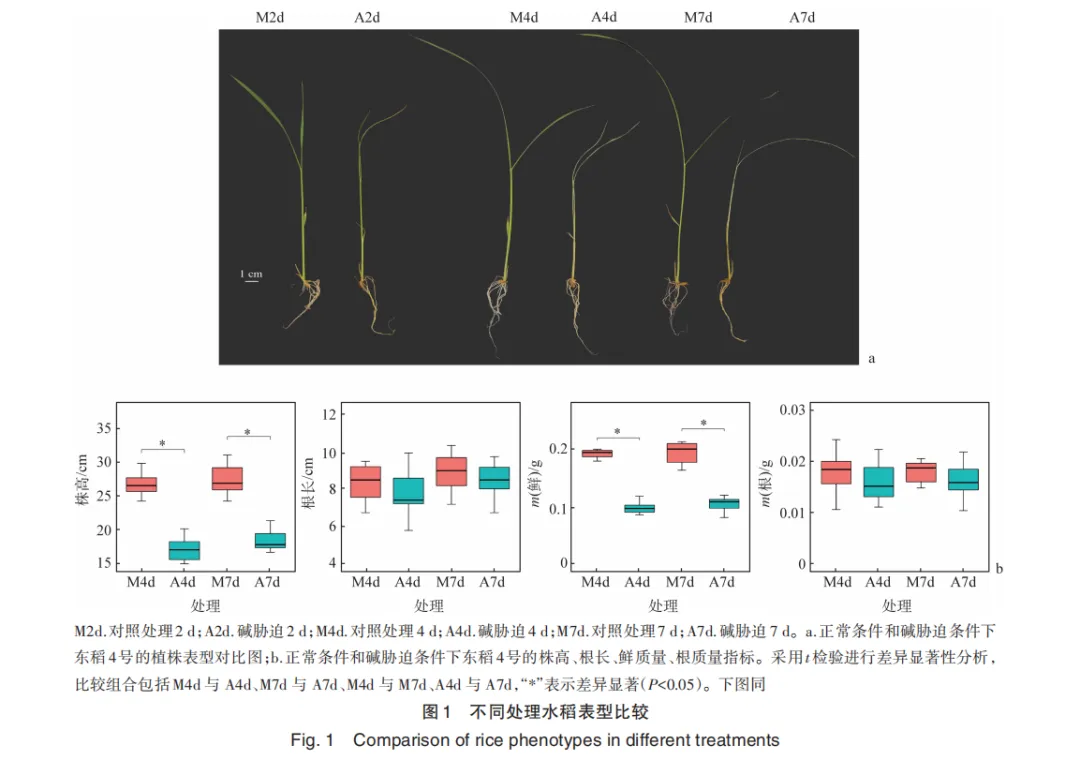
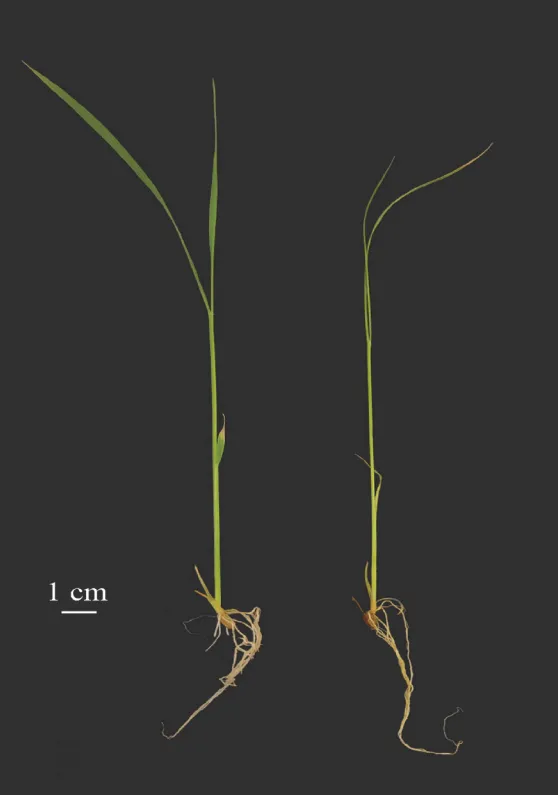
在高pH的碱胁迫下,植株的形态和生理性状会发生一系列的变化。本研究结果表明:碱胁迫1 d,植株叶尖部分发黄;胁迫2 d,植株叶片开始卷曲;胁迫3 d,植株叶片发生大面积卷曲、发黄;胁迫4 d,植株叶片全部卷曲;胁迫5,6 d,胁迫程度加重,叶片失绿程度更严重;胁迫7 d,植株基本趋向死亡(图1)。

选取胁迫4,7 d的植株进行表型性状数据测定,结果显示(图1):在植株受到碱胁迫时,4,7 d的水稻株高分别为17.15,18.25 cm,对照4,7 d水稻的株高分别为26.80,27.33 cm。t检验结果表明,胁迫与对照相比株高差异显著,而处理4,7 d相比,株高差异未达到显著水平;在水稻根长指标上,对照和胁迫处理下分别为8.36 cm(M4d),7.77 cm(A4d),8.95 cm(M7d),8.48 cm(A7d),胁迫能够在一定程度影响水稻根长,但影响程度未达到显著水平;正常生长4,7 d的水稻鲜质量分别为0.190 9,0.192 7 g,胁迫处理4,7 d的水稻鲜质量分别为0.097 2,0.104 7 g,鲜质量t检验结果表现与株高一致;在水稻根质量指标上,对照和胁迫处理下分别为0.017 8 g(M4d),0.015 8 g(A4d),0.017 9 g(M7d),0.016 1 g (A7d),差异显著性与根长一致。

结果表明:碱胁迫对水稻株高和鲜质量的抑制作用达到显著水平,且对根系的生长存在一定的影响,但未到显著水平;胁迫不同时间相比,胁迫4 d时植株已产生明显的表型变异情况,并且植株根系存在变黄现象。

2

碱胁迫对根系发育相关基因表达

的影响

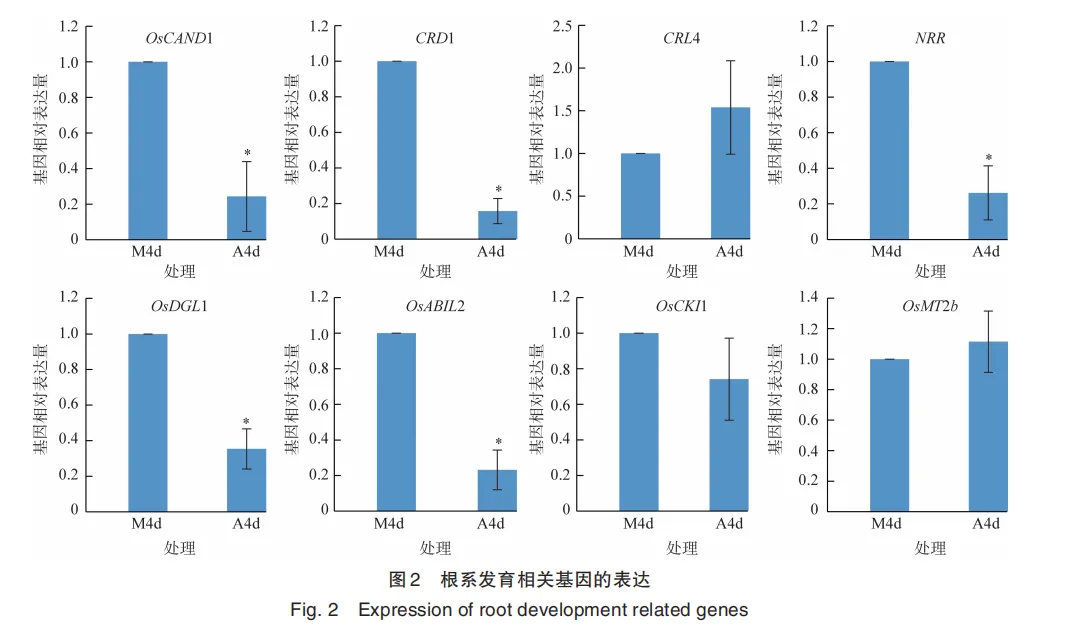
在碱胁迫环境下,水稻根系生长发育受到一定程度的影响,但是对根长、根质量等指标的影响未达显著水平(图1)。为进一步探究碱胁迫对根系的影响情况,选取8个根系发育相关基因,测定其在碱胁迫下的表达水平,结果显示:OsCAND1,CRD1,NRR,OsDGL1,OsABIL2基因的表达被碱胁迫抑制,A4d处理其表达量分别是M4d的0.24,0.15,0.26,0.35,0.23倍,均达到显著水平;CRL4,OsCKI1,OsMT2b基因的表达在碱胁迫下分别是对照的1.54,0.74,1.11倍,并未达到显著水平(图2)。结果表明:碱胁迫对水稻根系发育相关基因的影响较大。

3

碱胁迫对离子通道相关基因表达

的影响

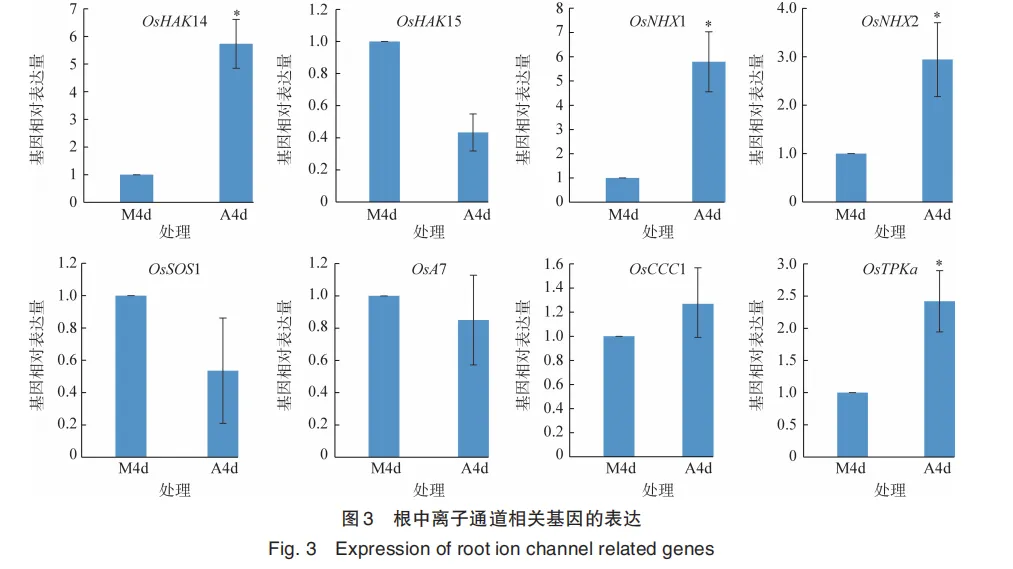
碱胁迫下,溶液中的高pH及高离子浓度会破坏水稻植株的离子平衡,植株为抵抗胁迫,只能改变多种离子通道相关基因的表达,以此调节细胞内的离子稳态。本试验选取12个离子通道相关基因,检测其在胁迫4 d时水稻根系的表达情况,结果显示:OsHKT1;1基因,OsHKT1;3基因,OsHKT2;3基因,OsKAT2基因未检测到表达;OsHAK14,OsNHX1,OsNHX2,OsTPKa基因的表达量被碱胁迫诱导,A4d处理表达量分别是M4d的5.73,5.79,2.94,2.42倍,表达量上调程度均达到显著水平;OsHAK15,OsSOS1基因的表达在碱胁迫下被抑制,但尚未达到显著水平,OsA7,OsCCC1基因的表达变化也未达到显著水平(图3)。结果表明:碱胁迫会对离子通道相关基因产生影响,通过改变部分基因的表达来调节植株根系细胞的Na+、K+等离子平衡,进而缓解胁迫压力。

4

碱胁迫对转录因子表达的影响

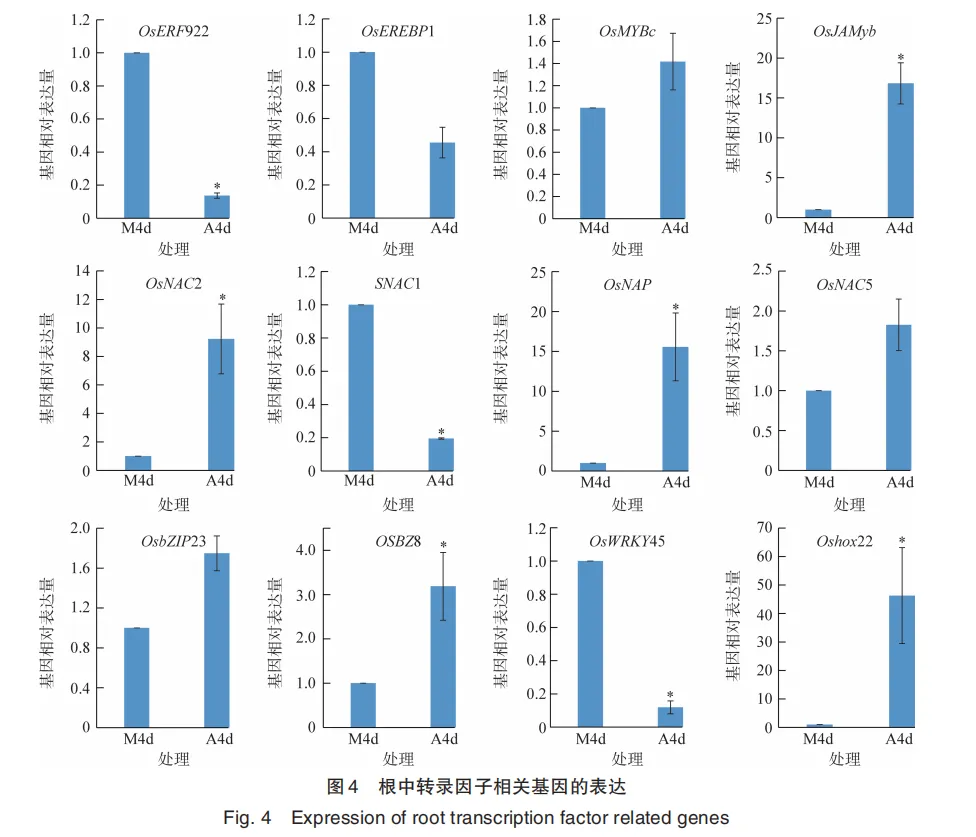
植株在响应胁迫的信号转导过程中,转录因子能够接受胁迫信号和调节相关基因的表达,因此本试验选取12个转录因子,检测其在碱胁迫下相较于对照的表达情况,结果显示:OsERF922,SNAC1,OsWRKY45基因的表达被碱胁迫抑制,A4d处理表达量分别是M4d的0.14,0.20,0.12倍,抑制程度达到显著水平;OsEREBP1基因的表达量在碱胁迫下相较于对照降低,为对照的0.46倍,但未达到显著水平;OsMYBc,OsNAC5,OsbZIP23基因的表达量在碱胁迫下相较于对照提高,分别为对照的1.42,1.83,1.75倍,但未达到显著水平;OsJAMyb,OsNAC2,OsNAP,OsBZ8,Oshox22基因的表达被碱胁迫诱导,A4d处理表达量分别是M4d的16.83,9.23,15.57,3.19,46.29倍,表达量上调程度均达到显著水平(图4)。结果表明:在碱胁迫下,不同转录因子相关基因的表达在不同程度上发生了改变,表明其在水稻抵抗逆境中起到一定的作用。

讨  论

碱胁迫对植株生长发育的抑制作用通常强于盐胁迫,这是由于碱胁迫存在高pH环境导致的[16]。水稻在苗期受到碱胁迫,表现为叶片卷曲枯萎、株高降低、根系生长也受到抑制,严重时会导致幼苗死亡[16,20]。在本试验中,在碱胁迫下,水稻表现出植株逐渐干枯发黄、株高降低、叶片卷曲、根系生长受限、植株鲜质量降低,均符合碱胁迫特征,并且水稻根系表现出变黄现象。因此,通过表型变异结果验证结论,即碱胁迫下的高pH可能引起营养液中金属离子在根系的沉积以及破坏根系细胞结构,影响根系对营养物质的吸收和正常的生理活动,从而破坏植株的生长发育,即显著影响株高、鲜质量等,最终导致植株地上部分干枯甚至趋向死亡[16]。本试验中选择的根系相关的8个基因均有报道,其在调控冠状根发育、调节根结构、参与根的发育方面起到重要作用[27-34],OsCAND1,CRD1,NRR,OsDGL1,OsABIL2基因被碱胁迫抑制且达到显著水平,而CRL4,OsCKI1,OsMT2b基因在碱胁迫下的表达量与对照的差异不显著,表明碱胁迫会影响部分根系生长发育相关的基因,限制根系的生长发育。不同的是,在本研究中碱胁迫能够在一定程度上影响根长和根质量,但是多组间比较未达显著水平,推测根长(最长根长)和根质量(根系鲜质量)不可能完全反映出碱胁迫对根系的影响,因此对根系的研究可能需要再考虑根系总根长、根系表面积、根系干质量等指标。

在碱胁迫环境下,水稻根系Na+大量积累,而K+、NO3-、Cl-等离子含量降低,从而产生离子毒害,影响根系发育[3]。植株为应对这些影响,通过调节离子通道[4]相关基因的表达,以改善细胞内异常增加的Na+,维持相对稳定的K+/Na+水平。离子通道相关的多数基因均已被证实,在调节Na+、K+等离子的进出细胞、维持细胞的离子稳态上发挥重要作用。植物基因组中离子通道相关的基因数量较多,研究多集中于抗旱、抗盐等非生物胁迫响应机制中的作用,碱胁迫尤其是高pH的混合碱胁迫下的研究较少,因此本试验选择了12个离子通道相关的基因,探究其在碱胁迫的响应情况,其中包括OsHKT2;3基因、OsHAK14基因、OsHAK15基因等。前人研究显示,液泡Na+/H+逆向转运蛋白基因(OsNHX)能够将细胞质中积累的Na+隔离到液泡中,从而减轻胁迫下细胞质中Na+的异常积累[5],并且OsTPKa也是定位在液泡膜上的双孔钾离子通道,在维持K+稳态中发挥作用[35]。在本试验中,OsNHX1,OsNHX2,OsTPKa基因在碱胁迫下的表达均显著高于对照,表明位于液泡膜上离子通道的活性是水稻在碱胁迫影响下维持细胞质离子稳态的重要手段。此外,OsHKT1;1基因、OsHKT1;3基因、OsHKT2;3基因、OsKAT2基因在胁迫和对照的根系组织中均未检测到表达,推测这些基因可能不在根系中发挥作用。相关研究表明,OsHKT1;1基因主要在叶片的韧皮部表达[36];OsHKT1;3基因主要在芽中表达,但是表达量很低[37];OsKAT2基因在水稻地上部保卫细胞中有表达[38]。因此,推测可能是基因表达的组织特异性导致的,而OsHKT2;3基因在水稻根系中是否受到非生物胁迫诱导表达有待进一步研究。除此之外,安玉艳等[47]和张翠梅等[48]提出,植物因胁迫时间和胁迫程度的不同,会出现阶段性响应特点,不同阶段植物抗逆机制的核心任务不同,因此应对不同环境胁迫时,基因表达在不同组织和胁迫条件下存在的特异性是研究应答基因的重要方面。另外,研究结果还显示,OsHAK14基因的表达受碱胁迫显著诱导,而OsHAK15基因的表达受碱胁迫抑制,但未达到显著水平,这与之前的OsNHX1、OsNHX2基因在盐胁迫下的表达情况不一致。因此,推测部分基因家族以剂量效应的方式来响应碱胁迫刺激,且植物对盐胁迫和碱胁迫的应答机制可能存在差异。其余3个基因的表达并没有受碱胁迫诱导而发生显著改变,推测其可能在碱胁迫响应过程中不发挥主要作用。

目前,大量研究证实转录因子参与非生物和生物胁迫的响应,但还有许多转录因子的分子机制暂不明确[17],并且转录因子在碱胁迫下的作用机理尚未明确,有待深入研究。已有研究显示,OsJAMyb[42],OsNAC2[10],OsNAP[43],OsBZ8[46],Oshox22[11]基因均能参与调节水稻对盐胁迫乃至非生物胁迫的应答。本试验结果显示,OsJAMyb,OsNAC2,OsNAP,OsBZ8,Oshox22基因的表达被碱胁迫显著诱导。OsERF922[41]负调控水稻的耐盐性,本试验中OsERF922基因的表达被碱胁迫显著抑制,表明这6个转录因子活性相关基因可能也在碱胁迫中起重要作用,有待进一步研究。另外,在碱胁迫下,SNAC1,OsWRKY45基因的表达相较于对照降低,且达到显著水平。已有研究显示,这2个基因能调节水稻的非生物耐性且表达上调[12-13],本试验结果与这些研究的结论不一致,推测可能是高pH环境破坏了水稻的根系细胞,进而影响基因表达。另有研究表明[49],水稻中存在2个等位基因OsWRKY45-1和OsWRKY45-2,它们在部分非生物胁迫中的响应存在差异,其中,OsWRKY45-2基因(不是OsWRKY45-1)负调控对盐胁迫的响应。在本试验结果中OsWRKY45基因的表达受碱胁迫抑制,推测OsWRKY45基因可能负调控水稻耐碱性,且“东稻4号”中该基因可能为OsWRKY45-2。SNAC1基因的表达受高盐诱导[12],但是本试验为混合碱胁迫,并且研究也表明,植物对2种胁迫的响应机制也存在差异[16],推测也可能是SNAC1基因的表达受碱胁迫抑制的原因,还有待进一步研究。OsEREBP1,OsMYBc,OsNAC5,OsbZIP23基因的表达并没有因受碱胁迫而显著改变,推测这4个转录因子可能在碱胁迫响应中不发挥主要作用,而在其他非生物胁迫中发挥重要作用。

综上,本试验通过较高程度的混合碱诱导,发现水稻根系的生长发育受限、部分根系发育相关基因被抑制表达,并且离子通道和转录因子活性相关基因表达发生改变,该结果不仅证实了这些基因在碱胁迫中发挥重要作用,还通过对比发现,盐胁迫和碱胁迫可能存在不同调控机制。这些基因表达的改变可能参与根系在碱胁迫中表型变异的调控过程而响应环境刺激,这一结果为深入研究水稻耐碱胁迫基因挖掘工作奠定基础。

本文引用格式

林宇杰,吴楠,邢又今,等.碱胁迫下水稻离子通道和转录因子相关基因的表达研究[J].吉林农业大学学报,2025,47(6):952-961. 

参考文献

上下滑动查看更多

1. 肖景华, 吴昌银, 袁猛, 等. 中国水稻功能基因组研究进展与展望[J]. 科学通报, 2015, 60(18): 1711-1722.

2. 朱建峰, 崔振荣, 吴春红, 等. 我国盐碱地绿化研究进展与展望[J]. 世界林业研究, 2018, 31(4): 70-75.

3. Hasegawa P M. Sodium (Na+) homeostasis and salt tolerance of plants[J]. Environmental and Experimental Botany, 2013, 92: 19-31.

4. Neverisky D L, Abbott G W. Ion channel‑transporter interactions[J]. Critical Reviews in Biochemistry and Molecular Biology, 2015, 51(4): 257-267.

5. Fukuda A, Nakamura A, Hara N, et al. Molecular and functional analyses of rice NHX‑type Na+/H+ antiporter genes[J]. Planta, 2011, 233(1): 175-188.

6. Hasanuzzaman M, Bhuyan M H M B, Nahar K, et al. Potassium: a vital regulator of plant responses and tolerance to abiotic stresses[J]. Agronomy, 2018, 8(3): 31.

7. Falhof J, Pedersen J T, Fuglsang A T, et al. Plasma membrane H(+)-ATPase regulation in the center of plant physiology[J]. Molecular Plant, 2016, 9(3): 323-337.

8. Baillo E H, Kimotho R N, Zhang Z B, et al. Transcription factors associated with abiotic and biotic stress tolerance and their potential for crops improvement[J]. Genes, 2019, 10(10): 771.

9. Dubey A, Ahmad Malla M, Kumar A, et al. Plants endophytes: Unveiling hidden agenda for bioprospecting toward sustainable agriculture[J]. Critical Reviews in Biotechnology, 2020, 40(8): 1210-1231.

10. Shen J B, Lü B, Luo L Q, et al. The NAC‑type transcription factor OsNAC2 regulates ABA‑dependent genes and abiotic stress tolerance in rice[J]. Scientific Reports, 2017, 7: 40641.

11. Zhang S X, Haider I, Kohlen W, et al. Function of the HD‑Zip I gene Oshox22 in ABA‑mediated drought and salt tolerances in rice[J]. Plant Molecular Biology, 2012, 80(6): 571-585.

12. Hu H H, Dai M Q, Yao J L, et al. Overexpressing a NAM, ATAF, and CUC (NAC) transcription factor enhances drought resistance and salt tolerance in rice[J]. PNAS, 2006, 103(35): 12987-12992.

13. Qiu Y P, Yu D Q. Over‑expression of the stress‑induced OsWRKY45 enhances disease resistance and drought tolerance in Arabidopsis[J]. Environmental and Experimental Botany, 2009, 65(1): 35-47.

14. Jisha V, Dampanaboina L, Vadassery J, et al. Overexpression of an AP2/ERF type transcription factor OsEREBP1 confers biotic and abiotic stress tolerance in rice[J]. PLoS One, 2015, 10(6): e0127831.

15. Zhu J K. Salt and drought stress signal transduction in plants[J]. Annual Review of Plant Biology, 2002, 53: 247-273.

16. 冷春旭, 郑福余, 赵北平, 等. 水稻耐碱性研究进展[J]. 生物技术通报, 2020(11): 103-111.

17. Yang C W, Xu H H, Wang L L, et al. Comparative effects of salt‑stress and alkali‑stress on the growth, photosynthesis, solute accumulation, and ion balance of barley plants[J]. Photosynthetica, 2009, 47(1): 79-86.

18. Guo R, Yang Z Z, Li F, et al. Comparative metabolic responses and adaptive strategies of wheat (Triticum aestivum) to salt and alkali stress[J]. BMC Plant Biology, 2015, 15: 170.

19. 扈艳萍. 不同穗型粳稻幼苗对盐碱胁迫的生理响应[J]. 沈阳农业大学学报, 2019, 50(4): 463-469.

20. 路旭平, 李芳兰, 马晓娟, 等. 不同碱敏感水稻品种根系对碱胁迫的生理响应策略[J]. 中国生态农业学报(中英文), 2021, 29(7): 1171-1184.

21. 杨福. 超高产耐盐碱优质水稻新品种东稻4的选育及应用[J]. 科技促进发展, 2015(6): 780-783.

22. Li Q, Yang A, Zhang W H. Comparative studies on tolerance of rice genotypes differing in their tolerance to moderate salt stress[J]. BMC Plant Biology, 2017, 17(1): 141.

23. Li Q, Ma C K, Tai H H, et al. Comparative transcriptome analysis of two rice genotypes differing in their tolerance to saline‑alkaline stress[J]. PLoS One, 2020, 15(12): e0243112.

24. Lü B S, Li X W, Ma H Y, et al. Differences in growth and physiology of rice in response to different saline‑alkaline stress factors[J]. Agronomy Journal, 2013, 105(4): 1119-1128.

25. 吴楠, 唐玙璠, 林宇杰, 等. 水稻‘一目惚’抵御盐碱胁迫部分相关基因表达[J]. 分子植物育种, 2019, 17(23): 7634-7640.

26. Chang W, Niu Y, Yu M N, et al. qPrimerDB: A powerful and user‑friendly database for qPCR primer design[J]. Methods in Molecular Biology, 2022, 2392: 173-182.

27. Wang X F, He F F, Ma X X, et al. OsCAND1 is required for crown root emergence in rice[J]. Molecular Plant, 2011, 4(2): 289-299.

28. Zhu J S, Li Y, Lin J, et al. CRD1, an Xpo1 domain protein, regulates miRNA accumulation and crown root development in rice[J]. The Plant Journal, 2019, 100(2): 328-342.

29. Kitomi Y, Ogawa A, Kitano H, et al. CRL4 regulates crown root formation through auxin transport in rice[J]. Plant Root, 2008, 2: 19-28.

30. Zhang Y M, Yan Y S, Wang L N, et al. A novel rice gene, NRR responds to macronutrient deficiency and regulates root growth[J]. Molecular Plant, 2012, 5(1): 63-72.

31. Qin C, Li Y Y, Gan J, et al. OsDGL1, a homolog of an oligosaccharyltransferase complex subunit, is involved in N‑glycosylation and root development in rice[J]. Plant & Cell Physiology, 2013, 54(1): 129-137.

32. Li C X, Shen H Y, Wang T, et al. ABA regulates subcellular redistribution of OsABI‑LIKE2, a negative regulator in ABA signaling, to control root architecture and drought resistance in Oryza sativa[J]. Plant & Cell Physiology, 2015, 56(12): 2396-2408.

33. Liu W, Xu Z H, Luo D, et al. Roles of OsCKI1, a rice casein kinase I, in root development and plant hormone sensitivity[J]. The Plant Journal, 2003, 36(2): 189-202.

34. Yuan J, Chen D, Ren Y J, et al. Characteristic and expression analysis of a metallothionein gene, OsMT2b, down‑regulated by cytokinin suggests functions in root development and seed embryo germination of rice[J]. Plant Physiology, 2008, 146(4): 1637-1650.

35. Isayenkov S, Isner J C, Maathuis F J M. Rice two‑pore K+ channels are expressed in different types of vacuoles[J]. The Plant Cell, 2011, 23(2): 756-768.

36. Wang R, Jing W, Xiao L Y, et al. The rice high‑affinity potassium Transporter1;1 is involved in salt tolerance and regulated by an MYB‑type transcription factor[J]. Plant Physiology, 2015, 168(3): 1076-1090.

37. Garciadeblás B, Senn M E, Bañuelos M A, et al. Sodium transport and HKT transporters: The rice model[J]. The Plant Journal, 2003, 34(6): 788-801.

38. Hwang H, Yoon J, Kim H Y, et al. Unique features of two potassium channels, OsKAT2 and OsKAT3, expressed in rice guard cells[J]. PLoS One, 2013, 8(8): e72541.

39. Martínez‑Atienza J, Jiang X Y, Garciadeblas B, et al. Conservation of the salt overly sensitive pathway in rice[J]. Plant Physiology, 2007, 143(2): 1001-1012.

40. Chen Z C, Yamaji N, Fujii‑Kashino M, et al. A cation‑chloride cotransporter gene is required for cell elongation and osmoregulation in rice[J]. Plant Physiology, 2016, 171(1): 494-507.

41. Liu D F, Chen X J, Liu J Q, et al. The rice ERF transcription factor OsERF922 negatively regulates resistance to Magnaporthe oryzae and salt tolerance[J]. Journal of Experimental Botany, 2012, 63(10): 3899-3911.

42. Yokotani N, Ichikawa T, Kondou Y, et al. Role of the rice transcription factor JAmyb in abiotic stress response[J]. Journal of Plant Research, 2013, 126(1): 131-139.

43. Chen X, Wang Y F, Lü B, et al. The NAC family transcription factor OsNAP confers abiotic stress response through the ABA pathway[J]. Plant & Cell Physiology, 2014, 55(3): 604-619.

44. Song S Y, Chen Y, Chen J, et al. Physiological mechanisms underlying OsNAC5-dependent tolerance of rice plants to abiotic stress[J]. Planta, 2011, 234(2): 331-345.

45. Xiang Y, Tang N, Du H, et al. Characterization of OsbZIP23 as a key player of the basic leucine zipper transcription factor family for conferring abscisic acid sensitivity and salinity and drought tolerance in rice[J]. Plant Physiology, 2008, 148(4): 1938-1952.

46. Mukherjee K, Choudhury A R, Gupta B, et al. An ABRE‑binding factor, OSBZ8, is highly expressed in salt tolerant cultivars than in salt sensitive cultivars of indica rice[J]. BMC Plant Biology, 2006, 6: 18.

47. 安玉艳, 梁宗锁. 植物应对干旱胁迫的阶段性策略[J]. 应用生态学报, 2012, 23(10): 2907-2915.

48. 张翠梅, 师尚礼, 吴芳. 干旱胁迫对不同抗旱性苜蓿品种根系生长及生理特性影响[J]. 中国农业科学, 2018, 51(5): 868-882.

49. Tao Z, Kou Y J, Liu H B, et al. OsWRKY45 alleles play different roles in abscisic acid signalling and salt stress tolerance but similar roles in drought and cold tolerance in rice[J]. Journal of Experimental Botany, 2011, 62(14): 4863-4874.
请点击下方二维码阅读期刊全文

期刊简介

《吉林农业大学学报》创刊于1979年,是吉林农业大学主办,由吉林省教育厅主管的农业综合类学术期刊,双月刊,国内外公开发行。《吉林农业大学学报》现为中国科学引文数据库(CSCD)收录期刊、北大核心期刊、中国科技核心期刊、中国核心学术期刊(RCCSE)A类期刊、中国农业工程领域高质量科技期刊分级目录T2级期刊、中国农业期刊集群创始成员刊、中国农业期刊最具传播力期刊。本刊已被《中国科学引文数据库》、《中文期刊全文数据库》、《中国科学技术期刊文摘(CSTA)数据库》、《中国学术期刊综合评价数据库》、《世界期刊影响力指数报告(WJCI)》、英国《国际农业与生物科学研究中心文摘》(CABI)、美国《化学文摘》(CA)、美国《农业文献题录》(B of A)、美国《国际药学文摘》(IPA)、英国《动物学记录》(ZR)、俄罗斯《文摘杂志》(AJ)等20多种国内外著名检索刊物及文献数据库摘引和全文收录。主要刊登作物栽培、遗传育种、植物保护、生物工程、生物技术、资源与环境科学、园艺科学、药用植物、中药学、动物科学与动物医学、食品科学与工程、农业工程、信息技术等学科及相关交叉学科的学术论文和文献综述等。读者对象是广大的科技工作者、高等院校的教师与研究生等。

吉林农业大学学报

文字|林宇杰

初审|王   希

复审|林海涛

终审|鞠善宏

请长按二维码关注我们

最新文章

随机文章