当前位置:首页>农业>Genomics|甘肃农业大学赵桂琴教授团队:转录组/代谢联合分析揭示燕麦抗大麦黄矮病的分子机制

Genomics|甘肃农业大学赵桂琴教授团队:转录组/代谢联合分析揭示燕麦抗大麦黄矮病的分子机制

  • 2026-10-26 00:37:35
Genomics|甘肃农业大学赵桂琴教授团队:转录组/代谢联合分析揭示燕麦抗大麦黄矮病的分子机制

点击上方蓝字"译景小筑",关注我们

文献标题:Integrated transcriptomic and metabolomic analysis reveals phenylpropanoid, amino acid, and glycerophospholipid pathways associated with the resistance to BYDV infection in oat文献译名:转录组与代谢组联合分析揭示苯丙烷、氨基酸及甘油磷脂通路参与燕麦抗大麦黄矮病毒侵染

期刊名称:Genomics发表时间:2026 年 4 月 9 日一作单位:甘肃农业大学 农学院通讯作者:赵桂琴 教授通讯邮箱:zhaogq@gsau.edu.cn项目基金:本研究由国家现代农业产业技术体系(CARS-7-C-1)、国家草业技术创新中心(筹建)创新平台建设专项(CCPTZX2023B05)、甘肃省首席科学家项目(23ZDKA01)资助。

01

研究背景

大麦黄矮病毒(BYDV)属于黄地黄病毒属(Luteovirus),是一种由禾谷缢管蚜(Rhopalosiphum padi)、麦长管蚜(Sitobion avenae)和麦二叉蚜(Schizaphis graminum)等蚜虫通过吸食植物汁液持久传播的韧皮部定位病毒。该病毒引发的大麦黄矮病在全球范围内广泛感染包括燕麦、大麦、小麦和玉米在内的多种禾谷类作物。受感染的植株通常表现出严重的生长迟缓以及叶缘紫红色或红色的特征性褪绿,蚜虫的取食不仅促进了病毒的传播,还造成了直接的组织损伤,极大地加剧了作物的产量和品质损失。在长期的进化过程中,植物形成了包括组成型防御和诱导型防御在内的复杂策略以抵御植食性昆虫及病原体。组成型防御依赖于固有的结构屏障或化学物质,而诱导型防御则通过激活苯丙烷代谢途径酶、蛋白酶抑制剂等防御相关蛋白,以及生物碱、黄酮类和单宁等次生代谢物来发挥毒性或干扰作用。本研究以耐受BYDV和对BYDV敏感的燕麦品种为研究对象,旨在深入探究其应对病毒感染的分子响应机制。

随着高通量测序技术的不断进步,多组学方法在解析植物与病虫害互作的分子基础方面展现出巨大潜力。在小麦等作物中,已有研究表明BYDV感染会导致叶绿体降解和植株矮化,这与Cab、GPT2和GluTR1等叶绿素及叶绿体合成基因的下调,以及AP2、ERF、PLD1和CBL9等乙烯和脱落酸信号基因的表达升高密切相关。此外,转录组学与代谢组学的联合分析已被成功应用于揭示多种植物在病原体胁迫下基因表达与代谢途径的相互作用,例如发现病毒感染会引发脂质代谢增强和糖代谢抑制等能量代谢重编程,或者特定代谢物可通过上调防御响应基因来显著增强抗病性。然而,尽管育种技术的进步促进了多样化燕麦种质资源的开发,燕麦在分子水平上响应蚜虫侵染和BYDV传播的具体机制在很大程度上仍属未知。这种转录水平变化与蛋白质、代谢物差异之间协同调控网络的认知缺失,构成了当前该领域亟待解决的重要研究空白。

当前的核心挑战在于如何从复杂的生物学数据中精准解析出植物应对病毒感染的协同防御网络,并将其转化为可用于作物改良的有效靶点。通过对具有不同抗性的燕麦品种开展综合的转录组学和代谢组学分析,能够系统性地鉴定参与防御反应的候选基因及相关代谢物。对差异表达基因和差异代谢物进行深度的通路富集分析,有助于揭示关键的代谢途径、特征性防御化合物以及潜在的抗性相关基因。这不仅能够全面阐明燕麦BYDV抗性背后的分子组分,为理解植物响应病毒感染的深层机制提供全新的科学见解,更能够为加速培育抗病毒燕麦新品种提供关键的理论支撑和分子靶标,从而更好地满足市场需求、支持农业可持续发展并应对日益严峻的环境挑战。

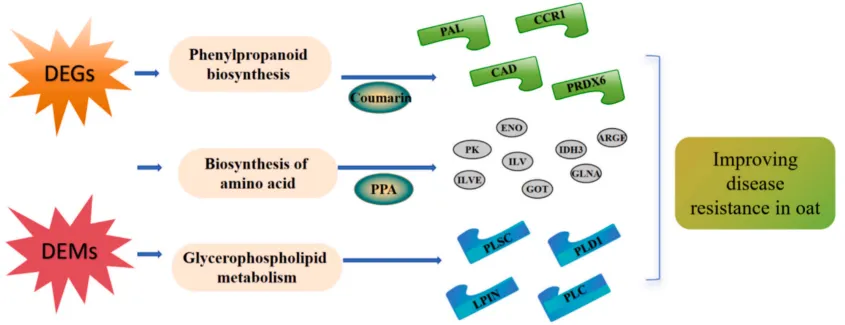
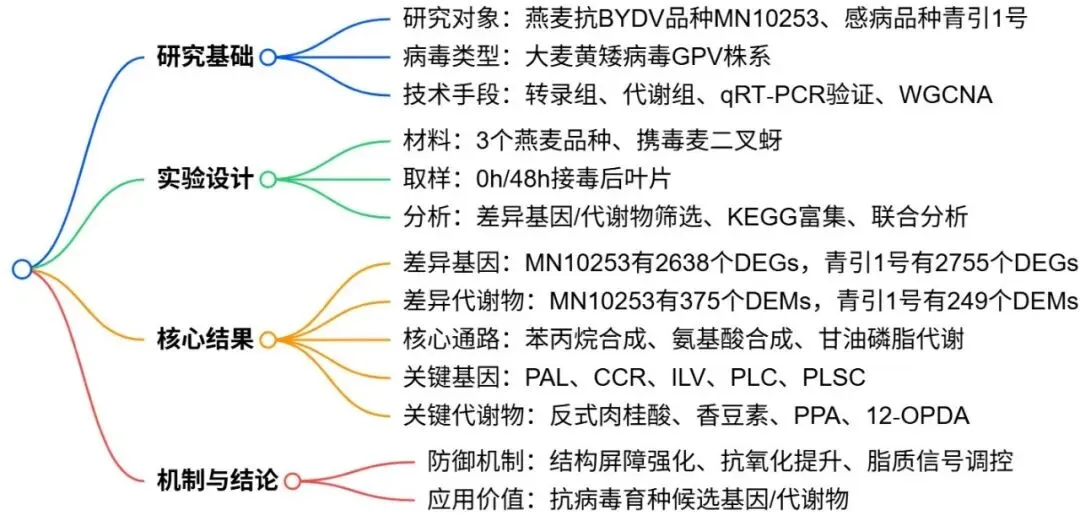
本研究以抗 BYDV 品种 MN10253与感病品种青引 1 号为材料,通过转录组 + 代谢组联合分析,发现燕麦抗 BYDV 的核心机制为苯丙烷生物合成、氨基酸生物合成、甘油磷脂代谢三条通路协同调控;抗病品种差异表达基因更少但防御通路激活更强,PAL、CCR、ILV、PLC等关键基因与反式肉桂酸、香豆素、丙酰苯丙氨酸、12 - 氧代植物二烯酸等代谢物显著上调,通过强化结构防御、提升抗氧化能力、调控脂质信号实现抗病毒,为燕麦抗病毒育种提供分子靶点。

02

研究方法

2.1 试验材料与病毒接种处理

为了探究燕麦响应大麦黄矮病毒(BYDV)感染的分子机制,研究选用了在田间试验中对BYDV表现出敏感的燕麦品种Qingyin 1和具有抗性的燕麦品种MN10253作为核心试验材料,并以Dingyou 4作为本地BYDV-GPV毒株的指示品种。接种媒介为在无病原体条件下实验室培育的麦二叉蚜(Schizaphis graminum)。试验在受控环境室中进行,将燕麦种子播种于营养土与蛭石混合的基质中培育至三叶一心期。接种前,使无毒蚜虫在感染病毒的植株上暗处理饲毒72小时以获取目标病原体。随后,在每株燕麦自上而下的第2和第3片真叶背面接种10只带毒的无翅成蚜,并立即使用防虫网隔离以防污染。分别在接种后0小时(接种后立即取样,无取食发生,作为基线对照)和48小时(反映带毒蚜虫取食后的组学响应)收集叶片样本。去除蚜虫后,将叶片在液氮中速冻并置于-80°C保存,以备后续分析。

2.2 转录组与代谢组学数据获取及分析

为揭示燕麦在病毒侵染下的分子响应,对收集的叶片样本进行了系统的转录组测序和非靶向代谢组学分析。在转录组层面,提取样本总RNA并构建测序文库,通过多聚T磁珠富集mRNA并进行片段化,随后合成双链cDNA并完成末端修复、加A尾及接头连接,经PCR扩增和纯化后在Agilent Bioanalyzer 2100系统上进行质量评估。基因注释依赖于KEGG、GO、Swiss-Prot等多个公共数据库;利用WGCNA R包对MN10253的所有差异表达基因构建加权基因共表达网络(设定无标度拓扑拟合指数R² > 0.8)。在代谢组层面,采用UPLC-QTOF-MS系统对70%甲醇提取的代谢物进行分析。质谱在正负离子模式下运行,数据预处理阶段利用内部Perl软件去除了不同同位素、源内碎片以及K⁺、Na⁺和NH₄⁺加合物产生的冗余信号,随后通过KEGG、HMDB和LIPID MAPS等数据库完成代谢物的比对与鉴定。

2.3 关键基因表达验证与统计学分析

为验证转录组测序数据的准确性,研究从苯丙烷生物合成、氨基酸生物合成和甘油磷脂代谢途径中挑选了12个代表性基因进行qRT-PCR分析。以Actin作为内参基因,采用2⁻ΔΔCt方法计算目标基因的相对表达量。在数据统计与差异筛选方面,转录组数据利用DESeq2基于负二项分布模型进行差异分析,将经Benjamini-Hochberg方法校正后p < 0.01的基因定义为差异表达基因(DEGs)。代谢组数据在总峰面积归一化后,结合倍数变化(FC > 1或 < 1)、Student's t检验(p < 0.05)以及正交偏最小二乘法判别分析(OPLS-DA)提取的变量投影重要性(VIP > 1)三个标准来严格筛选差异表达代谢物(DEMs)。最终,利用超几何分布检验对鉴定出的DEGs和DEMs进行KEGG通路富集分析,以评估生物学通路响应病毒胁迫的统计学显著性。

03

研究结果

3.1 燕麦叶片响应BYDV感染的差异表达基因鉴定

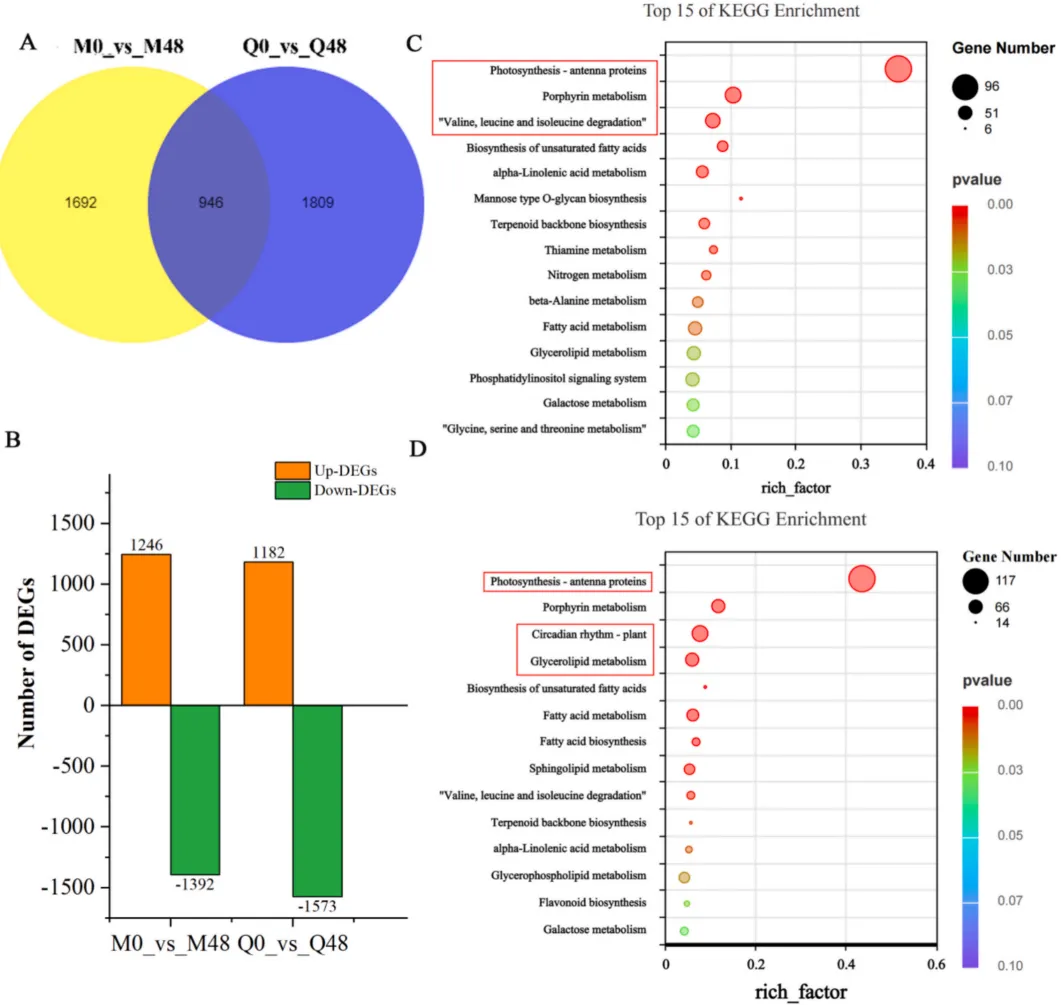
  • 差异基因鉴定:在抗性品种MN10253(M0_vs_M48)和易感品种Qingyin 1(Q0_vs_Q48)中分别鉴定出2638个和2755个差异表达基因(DEGs),两组共有946个DEGs。

  • 通路富集分析:MN10253中的DEGs主要富集于光合作用-天线蛋白、卟啉代谢及支链氨基酸降解途径;而Qingyin 1中的DEGs主要富集于光合作用-天线蛋白、植物昼夜节律及甘油脂代谢途径。

为评估不同抗性燕麦品种对BYDV的转录响应,研究对比了感染前后(0小时与48小时)的基因表达变化。结果表明,病毒感染在两个品种中均诱导了大量的基因表达重编程,但转录响应存在显著差异。抗性品种和易感品种在面对病毒胁迫时激活了截然不同的代谢通路,这暗示了其潜在的抗性机制分化(Fig.1)。

图1. 燕麦叶片感染BYDV后的转录组分析 两个比较组:M0_vs_M48(抗性品种MN10253)和Q0_vs_Q48(易感品种Qingyin 1)。(A) 韦恩图展示了两组间共有和特有的DEGs数量。(B) 与0小时相比,MN10253和Qingyin 1在感染后48小时鉴定出的上调和下调DEGs总数。(C, D) MN10253 (C) 和Qingyin 1 (D) 中DEGs的KEGG通路富集分析,突出了受BYDV感染影响的关键生物学途径。

3.2 加权基因共表达网络分析(WGCNA)

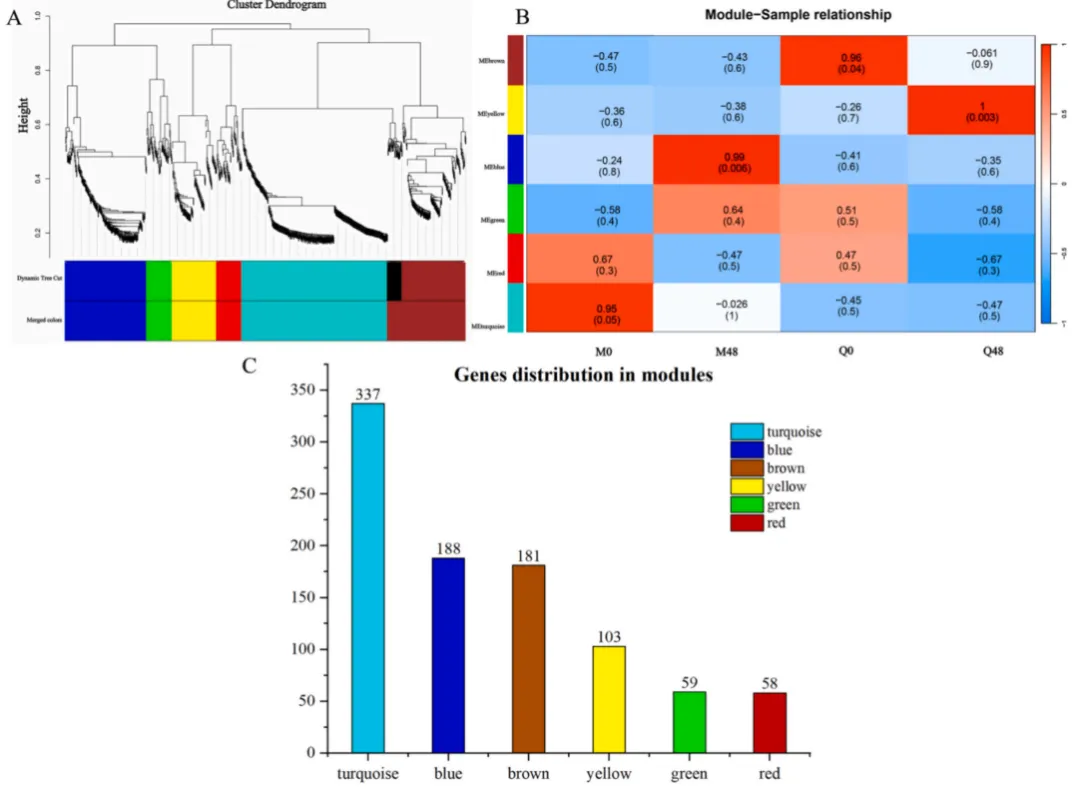
  • 共表达模块:基于12个燕麦样本的转录组数据,WGCNA将具有相似表达模式的基因聚类为六个不同的共表达模块,其中绿松石色模块包含的基因数量最多。

  • 模块与样本:热图显示四个模块与特定处理条件高度相关,如绿松石色和蓝色模块分别与MN10253的0小时和48小时高度相关,而棕色和黄色模块分别与Qingyin 1的0小时和48小时高度相关。

为深入探究响应BYDV感染的基因共表达模式,采用WGCNA方法对转录组数据进行了模块化分析。结果揭示了各共表达模块在不同时间点和不同品种间呈现出特异性的表达趋势。这种高度的模块-样本相关性表明,每个品种在BYDV感染的不同阶段均表现出独特的基因共表达网络,为理解抗性与易感性背后的动态转录调控提供了重要线索(Fig.2)。

图2. 基因共表达聚类与模块-样本相关性分析 (A) 所有样本中共表达基因的层次聚类,形成六个不同的模块。(B) 热图展示了每个模块与样本之间的相关性,说明了不同时间点和品种间基因表达模式的差异。(C) 每个共表达模块内基因数量的分布。

3.3 燕麦叶片响应BYDV感染的代谢组学分析

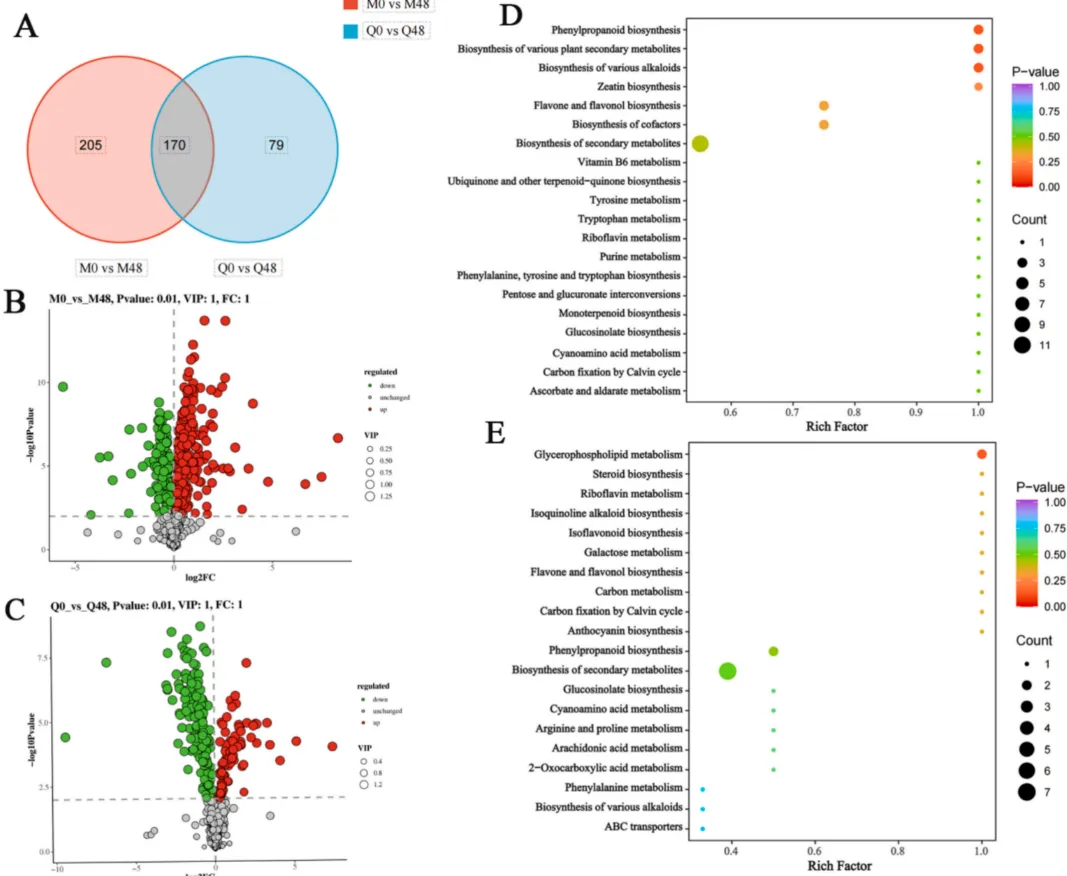
  • 差异代谢物:MN10253和Qingyin 1在感染前后分别鉴定出375个和249个差异表达代谢物(DEMs),其中MN10253在感染后48小时表现出显著更多的上调代谢物。

  • 代谢通路富集:MN10253中的DEMs主要参与苯丙烷代谢、多种次生代谢物生物合成及生物碱生物合成;而Qingyin 1中的DEMs主要富集于甘油磷脂代谢途径。

通过对感染BYDV前后燕麦叶片的代谢组学分析,揭示了抗性与易感品种在代谢水平上的显著差异。抗性品种MN10253在感染后积累了大量上调的代谢物,表明其具有更活跃的与抗病性相关的代谢响应。KEGG富集分析进一步证实,两个品种在应对病毒胁迫时激活了完全不同的代谢网络,抗性品种更倾向于次生代谢防御(Fig.3)。

图3. MN10253和Qingyin 1燕麦叶片响应BYDV感染的代谢组学概貌 (A) 韦恩图展示了MN10253 (M0_vs_M48) 和Qingyin 1 (Q0_vs_Q48) 中差异表达代谢物 (DEMs) 的分布。(B, C) 火山图说明了MN10253 (B) 和Qingyin 1 (C) 中上调和下调的DEMs。(D, E) MN10253 (D) 和Qingyin 1 (E) 中DEMs的KEGG通路富集分析。

3.4 DEGs与DEMs的联合富集分析

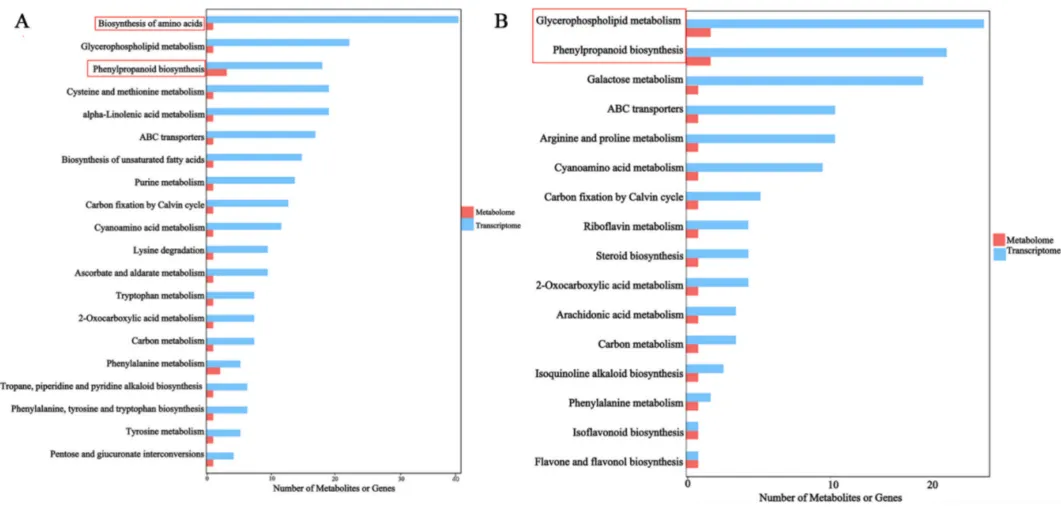
  • 联合富集分析:在抗性品种MN10253中,苯丙烷生物合成和氨基酸生物合成是最显著富集的途径;而在易感品种Qingyin 1中,主要富集于苯丙烷生物合成和甘油磷脂代谢途径。

综合转录组和代谢组数据的KEGG通路联合富集分析,精准定位了燕麦响应BYDV感染的核心代谢途径。结果表明,苯丙烷和氨基酸代谢途径在燕麦的防御反应中发挥着至关重要的作用,特别是这些途径的协同激活可能是增强抗性品种对BYDV抵御能力的关键分子基础(Fig.4)。

图4. MN10253 (A) 和 Qingyin 1 (B) 中DEGs和DEMs的KEGG通路联合富集分析 使用超几何检验计算富集显著性。红色箭头指示富集的代谢物,蓝色箭头指示苯丙烷生物合成 (ko00940)、氨基酸生物合成 (ko01230) 和甘油磷脂代谢 (ko00564) 途径中富集的基因。

3.5 BYDV感染后的苯丙烷代谢途径

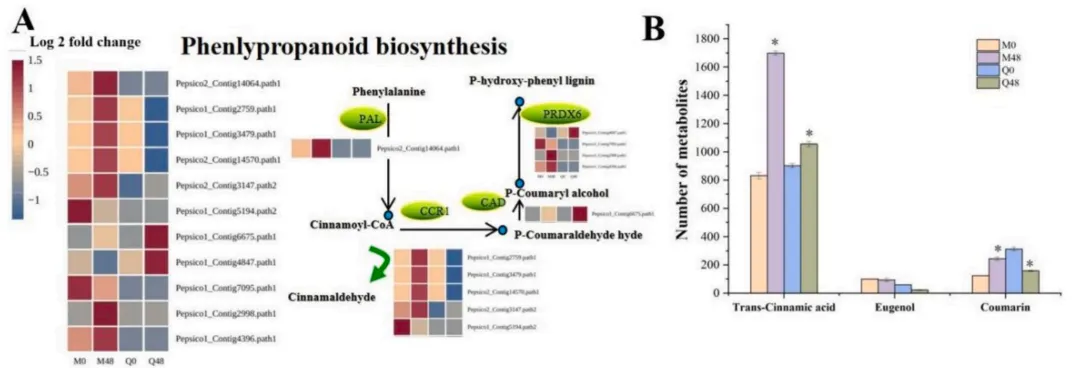
  • 关键基因表达:在MN10253中,编码PAL、CCR和PRDX6的关键基因在感染后48小时显著上调;而这些基因在Qingyin 1中保持不变或下调,仅部分CAD和PRDX6基因上调。

  • 代谢物变化:反式肉桂酸、丁香酚和香豆素在两品种中均富集,但MN10253中反式肉桂酸和香豆素水平显著增加,而Qingyin 1中香豆素水平显著下降。

KEGG通路分析深入揭示了苯丙烷生物合成途径在两品种间的差异调控。抗性品种通过显著上调该途径的关键酶基因,促进了相关防御性次生代谢物的合成。特别是香豆素在抗性与易感品种间截然相反的积累模式,强烈暗示其可能作为燕麦抵御BYDV感染的关键防御代谢物发挥作用(Fig.5)。

图5. BYDV感染后MN10253和Qingyin 1中苯丙烷生物合成途径的基因表达 (A) 和代谢物 (B) 变化 红色突出的基因表示上调,蓝色表示下调。色标对应于log2倍数变化值。星号表示与同一基因型对应的未接种0小时对照相比存在显著差异 (p < 0.05)。

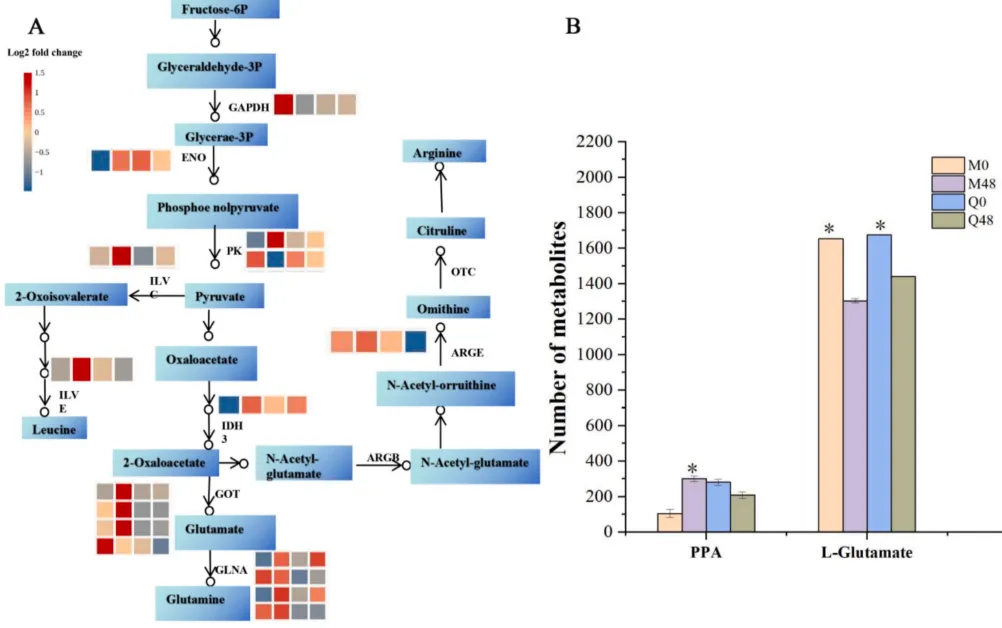
3.6 BYDV感染后氨基酸生物合成途径的变化

  • 氨基酸代谢:差异基因和代谢物主要涉及由2-酮戊二酸和N-乙酰鸟氨酸驱动的谷氨酰胺、亮氨酸和精氨酸生物合成途径。

  • 基因与代谢:MN10253中ENO、PK、ILV等关键酶基因显著上调,且丙酰苯丙氨酸(PPA)丰度显著增加;而L-谷氨酸水平在两品种中均下降。

基于氨基酸代谢网络的综合分析表明,抗性品种在BYDV感染后能够更有效地重塑氨基酸生物合成途径。通过上调多种关键代谢酶的表达,不仅促进了特定氨基酸及其衍生物(如PPA)的积累,还揭示了氨基酸代谢在介导燕麦抗病毒防御响应中不可或缺的调节作用(Fig.6)。

图6. MN10253和Qingyin 1感染BYDV后氨基酸生物合成差异调控的通路图 红色突出的基因表示上调,蓝色表示下调。星号表示与同一基因型对应的未接种0小时对照相比存在显著差异 (p < 0.05)。

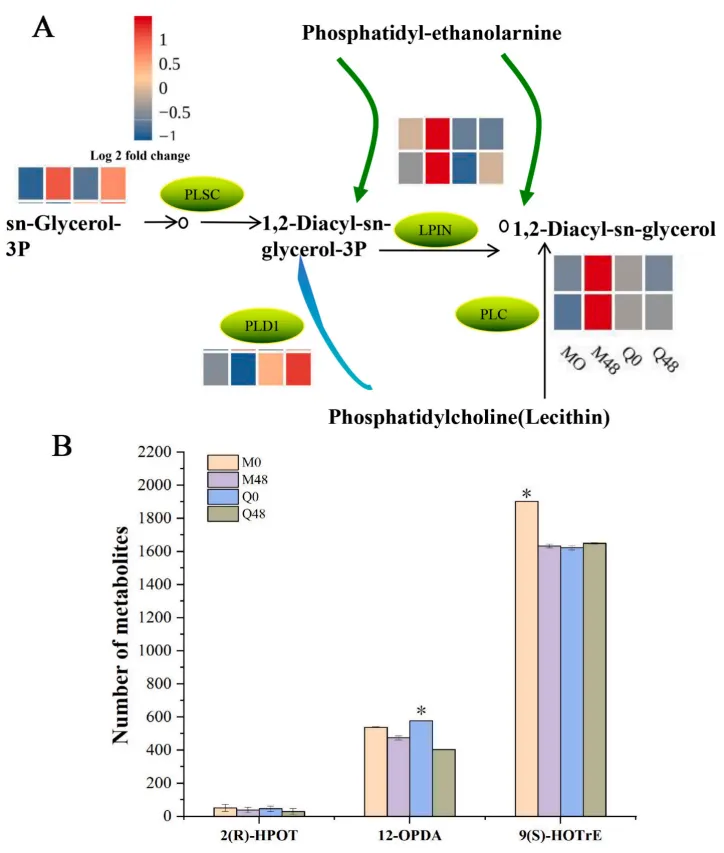
3.7 BYDV感染下的甘油磷脂代谢途径

  • 脂质代谢基因:抗性品种中PLD1基因下调,而PLSC、LPIN和PLC基因在感染后48小时较易感品种显著上调。

  • 氧脂质变化:参与脂质信号传导的氧脂质代谢物12-OPDA和9(S)-HOTrE在两品种感染后48小时均呈现显著下降趋势。

甘油磷脂代谢途径的重编程是燕麦响应BYDV胁迫的重要环节。抗性品种通过特异性上调或下调特定的磷脂酶基因,精细调控了脂质代谢网络。同时,关键信号脂质分子的显著消耗,暗示了甘油磷脂代谢及其偶联的脂质信号传导机制可能积极参与了燕麦的抗病毒防御反应(Fig.7)。

图7. 与甘油磷脂代谢途径相关的DEGs 最大/最小log2 FPKM值设置为±2.0(红色表示上调,蓝色表示下调)。每条水平行代表一个DEG,垂直列分别代表两个基因型(MN10253和Qingyin 1)的两个时间点(0,48小时)。星号表示与同一基因型对应的未接种0小时对照相比存在显著差异 (p < 0.05)。

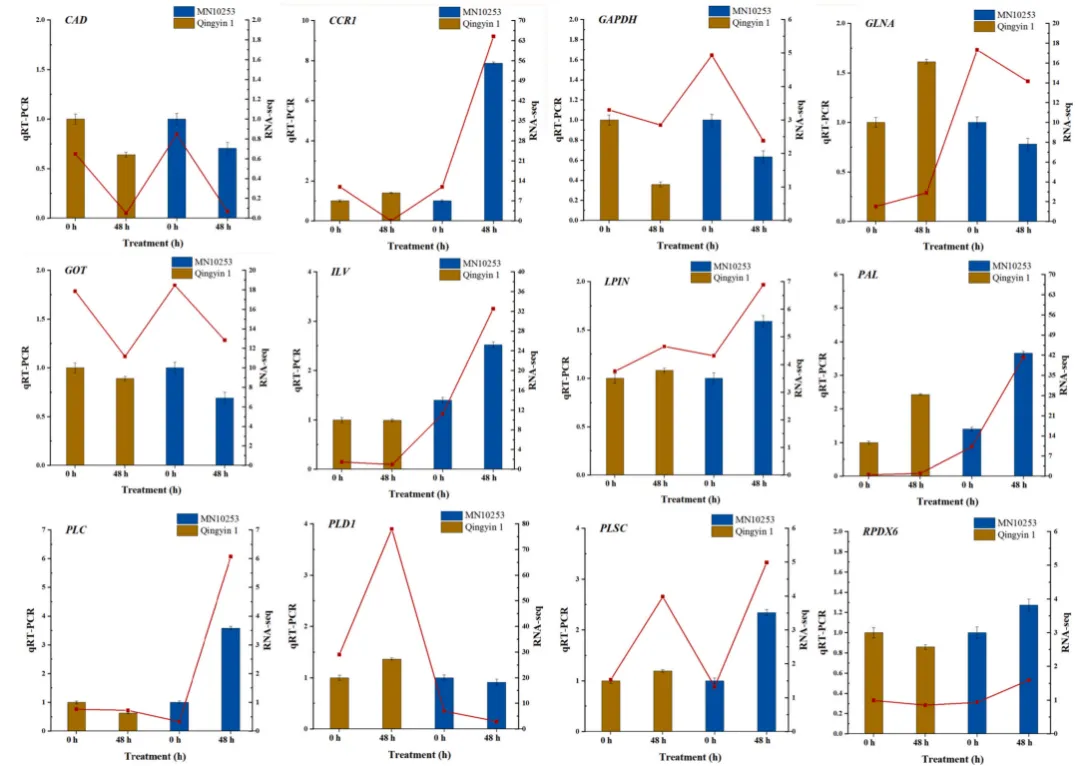
3.8 关键通路基因的qRT-PCR验证

  • 基因表达验证:对三大核心代谢途径中的12个代表性基因进行qRT-PCR分析,结果与转录组测序数据高度一致,证实了表达谱的可靠性。

  • 抗性机制差异:MN10253中CCR1、PAL、ILV等基因在感染后显著上调,而Qingyin 1中仅少数基因表现出中度诱导。

为确保组学数据的准确性,采用qRT-PCR对关键代谢途径的核心基因进行了表达量验证。验证结果不仅证实了RNA-seq数据的稳健性,更进一步凸显了抗性与易感品种在面对BYDV-GPV感染时截然不同的转录响应模式,深刻反映了两者潜在防御机制的本质差异(Fig.8)。

图8. 接种BYDV-GPV后抗性 (MN10253) 和易感 (Qingyin 1) 燕麦品种关键通路中代表性基因的qRT-PCR验证 分析了0小时和接种后48小时苯丙烷生物合成 (CCR1, PAL, CAD)、氨基酸生物合成 (GAPDH, GLNA, GOT, ILV, RPDX6) 和甘油磷脂代谢 (PLSC, PLD1, LPIN, PLC) 途径中12个代表性基因的表达模式。折线图代表RNA-seq表达数据,而条形图显示qRT-PCR验证结果。

04

研究创新性

  • 首次在燕麦中应用多组学联合策略解析BYDV抗性机制:针对燕麦响应大麦黄矮病毒(BYDV)侵染的分子机制在很大程度上仍属未知的研究空白,本研究首次综合运用转录组学和非靶向代谢组学技术,对极端抗性(MN10253)和易感(Qingyin 1)燕麦品种进行了对比分析。这种多维度的研究策略突破了单一组学的局限,成功构建了燕麦响应病毒胁迫的“基因-代谢物”协同调控网络。

  • 揭示了初级与次级代谢深度协同的抗病毒防御网络:研究创新性地指出,燕麦的高抗性并非依赖单一的防御反应,而是由苯丙烷生物合成(次级代谢)、氨基酸生物合成(初级代谢)和甘油磷脂代谢三大核心通路共同驱动。这打破了以往重次级代谢轻初级代谢的认知,强调了初级代谢(如亮氨酸、谷氨酰胺合成)在提供防御能量、代谢中间体及抗氧化底物(如丙酰苯丙氨酸PPA)方面的重要支撑作用,并与次级代谢(如合成木质素物理屏障和香豆素化学防御)形成了无缝衔接的防御体系。

  • 提出了脂质信号传导中的“精细微调与克制性”防御新策略:传统植物免疫理论常将强烈的脂质信号爆发与超敏反应(HR)导致的细胞坏死联系在一起。然而本研究发现,抗性品种在感染后反而下调了介导细胞死亡的PLD1基因,上调了PLC基因,并表现出关键氧脂质(如12-OPDA和9(S)-HOTrE)的消耗或低水平积累。这一发现揭示了一种全新的抗性平衡策略:抗性燕麦通过精细微调甘油磷脂代谢,在有效激活防御网络的同时,避免了强烈的免疫过度反应和组织损伤,从而更好地维持了细胞膜的稳定性。

  • 精准锁定了极具育种价值的抗病候选基因与特征代谢标志物:研究不仅阐明了宏观的代谢通路,还精准挖掘到了在抗性品种中被强烈诱导的关键基因靶点(如PAL、CCR、ILV、PLC),并鉴定出反式肉桂酸、香豆素、丙酰苯丙氨酸(PPA)等核心代谢物。特别是发现香豆素在抗性与易感品种间呈现出截然相反的积累模式,这为未来通过基因编辑或分子标记辅助选择培育抗病毒燕麦新品种提供了明确、可靠的分子靶标和代谢标志物。

审核|林蘖亙阅读科研文献,荟萃前沿进展

欢迎关注、转发、投稿、点赞

最新文章

随机文章