Plant Commun | 中国农业大学杨文才/杜敏敏团队揭示番茄黄酮代谢调控精妙分区!花青素筑牢种子防护屏障
- 2026-10-21 05:25:09
Plant Commun | 中国农业大学杨文才/杜敏敏团队揭示番茄黄酮代谢调控精妙分区!花青素筑牢种子防护屏障
花青素和原花青素(PAs)是植物中两类极其重要的类黄酮物质,对植物抗性和人体健康均有显著益处。在番茄果实中,花青素通常在特定野生种的果皮中积累,而 PAs 则主要富集于种皮,参与种子成熟与保护。虽然这两类化合物共享上游合成途径且均受 MYB-bHLH-WD40(MBW)转录模块复合体调控,但在番茄果实中,究竟是什么机制驱动了它们在空间上的排他性分布?特别是控制种子 PAs 合成的核心 MYB 因子及其与花青素路径的互作逻辑,此前的科学认知仍处于空白。 2026年5月7日,中国农业大学园艺学院杨文才教授与杜敏敏教授团队,在植物学知名期刊《Plant Communications》上在线发表(非最终校稿)了题为“Spatial control of anthocyanin and proanthocyanidin production in tomato fruits by competitive MBW complexes for seed dispersal”的研究论文。研究鉴定到了番茄种子中原花青素(PAs)合成的关键调节因子 SlMYB54,并揭示了其与果皮花青素调节因子 SlAN2-like 通过竞争共用的 bHLH 亚基 SlAN1,从而在空间上精准控制两类代谢物差异化积累的分子机制。研究不仅阐明了植物如何通过代谢物空间隔离策略来协同种子扩散,也为通过精准操纵组织特异性 MYB 路径培育富含营养、高抗性的番茄新品种提供了重要的理论框架和遗传工具。 
研究首先探究了番茄果实内花青素和原花青素的时空积累模式,同时利用转录组测序分析合成通路结构基因的表达特征。花青素和原花青素生物合成的共享结构基因在果皮和种子中均被稳定检测到。相比之下,花青素特异性结构基因仅在果皮中表达,而原花青素特异性结构基因则仅在种子中表达。这些结果表明,番茄果实中花青素和原花青素的生成具有空间特异性,这可能是由组织特异性表达导致的。研究团队通过表达谱分析发现番茄MBW复合物的共用亚基碱性螺旋-环-螺旋(bHLH)组分 SIAN1和 WD 重复蛋白(WDR)组分SIAN11在果皮和种子中均显著表达。利用 CRISPR/Cas9 技术分别敲除这两个基因后,突变体不仅表现出果皮花青素着色的显著减弱,其种子中的 PAs 含量也剧烈下降且种皮颜色变浅。这表明了SlAN1和SlAN11正向调控番茄果实中花青素和原花青素的积累。 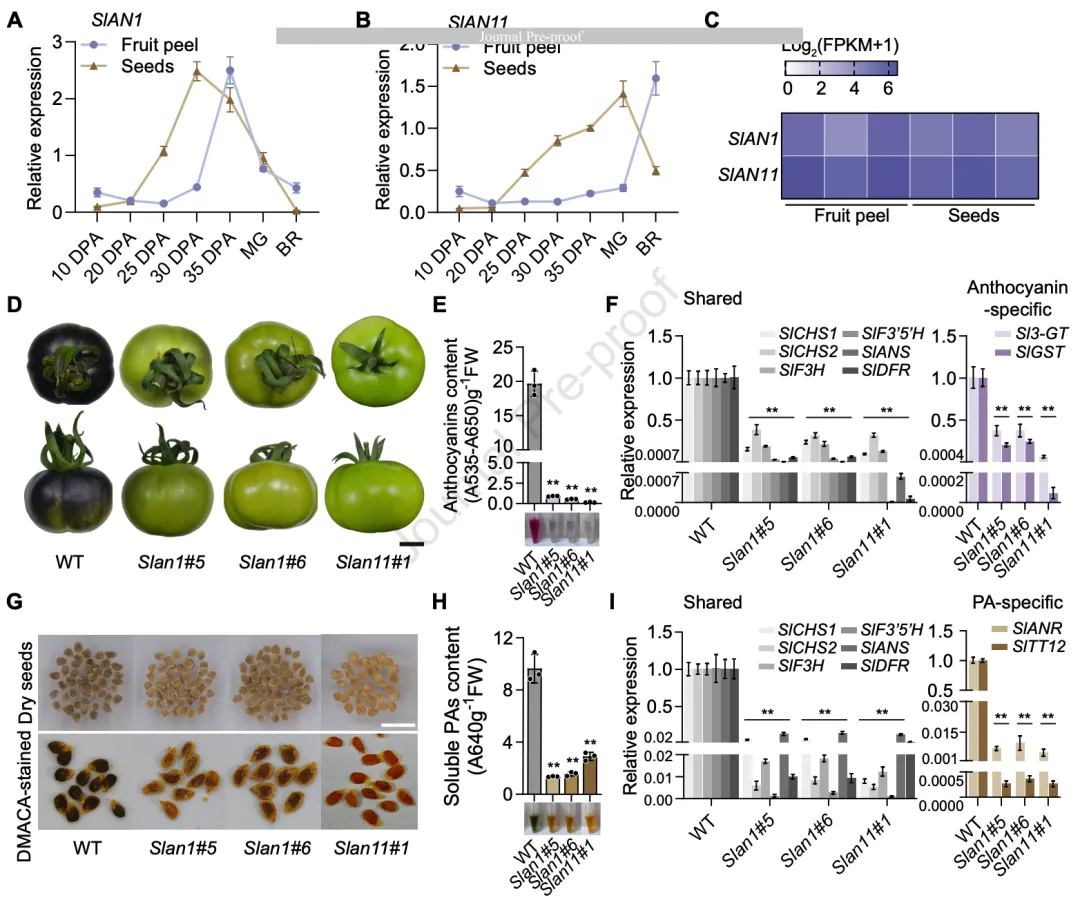
图1 SlAN1 和 SlAN11 在番茄果皮花青素和种子 PAs 积累中发挥重要作用 为明确MYB转录因子的组织特异性调控功能,研究筛选出SlAN2-like、SlMYB54、SlMYB5三类MYB基因,借助基因编辑、过表达技术开展功能验证。实验发现SlAN2-like特异性在果皮高表达,敲除该基因后果皮花青素含量大幅下降,种子原花青素无明显变化;SlMYB54与SlMYB5特异性在种子中表达,敲除SlMYB54会造成种子原花青素含量降低,双突变体表型缺陷更显著,过表达SlMYB54则可提升种子中原花青素积累量。该结果说明SlAN2-like专一调控果皮花青素合成,SlMYB54、SlMYB5负责调控种子原花青素合成。 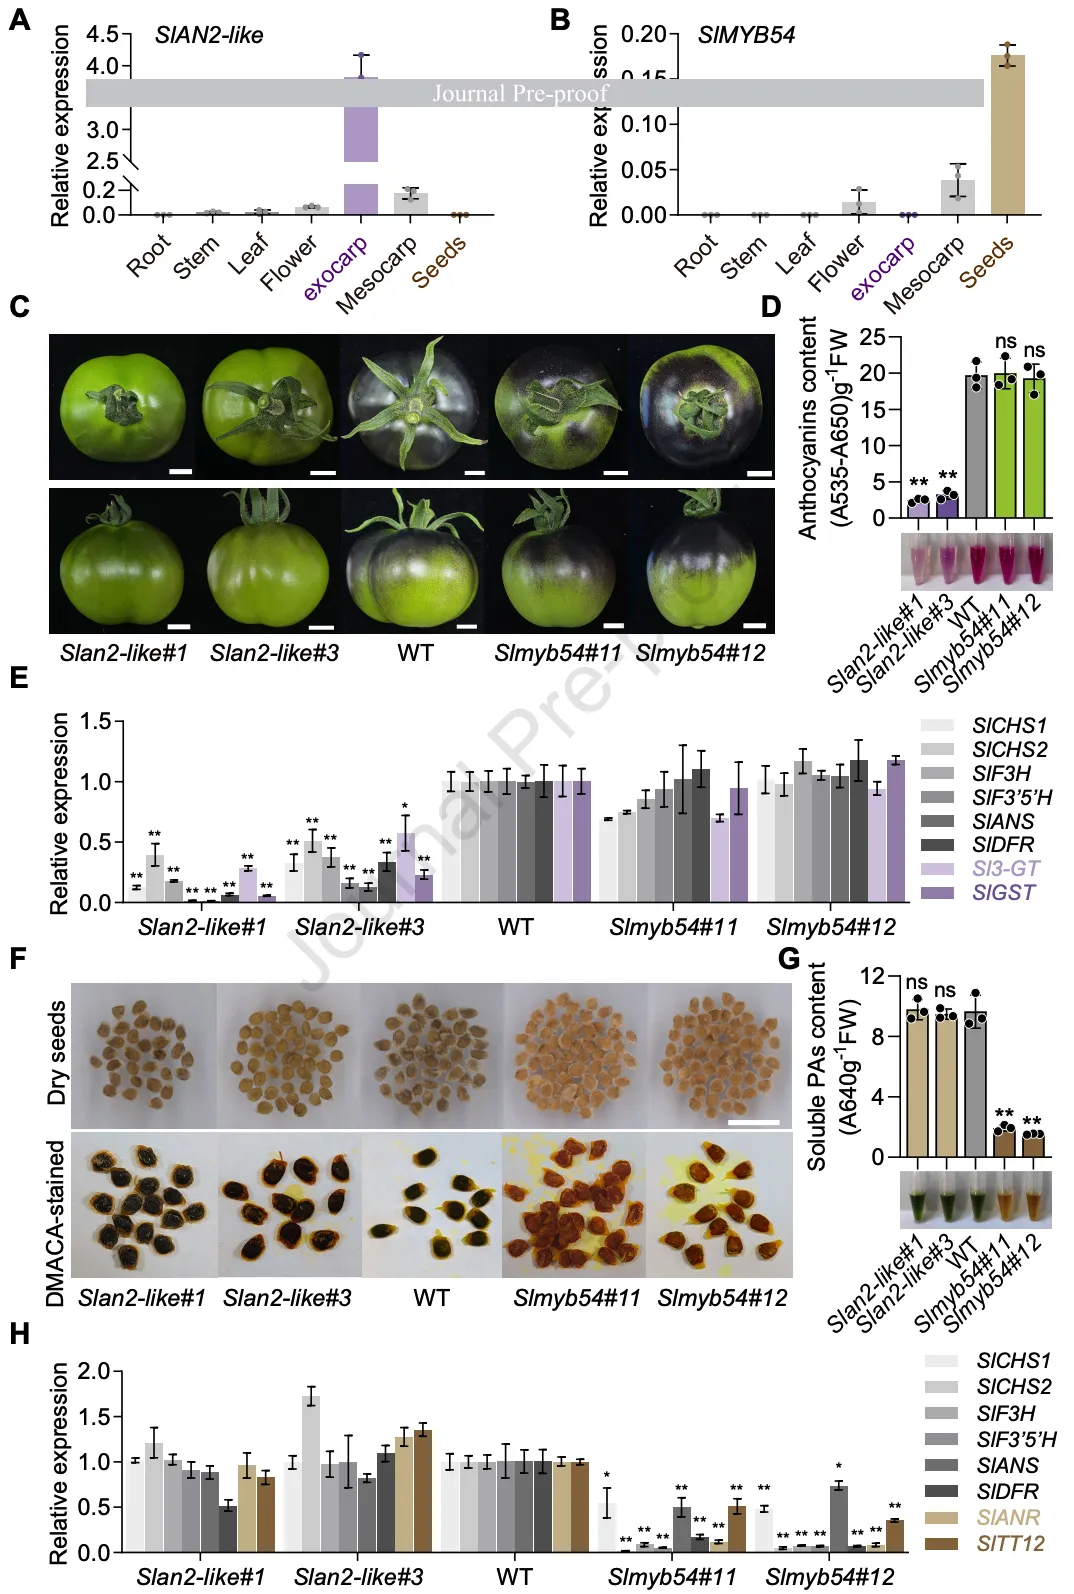
图2 SlAN2-like和SlMYB54差异化调控番茄花青素和原花青素的生物合成 通过酵母双杂交、双分子荧光互补、免疫共沉淀、体外pull-down多种蛋白互作试验,验证种子特异性MYB蛋白与bHLH蛋白的结合关系。试验结果表明,SlMYB54、SlMYB5均可在体内和体外与SlAN1发生物理互作,结合位点为蛋白R3结构域,二者可作为MYB组分共同构成种子中原花青素合成的MBW调控复合物。 为探究SlAN2-like与SlMYB54能否特异性结合花青素和原花青素合成通路的专属结构基因,研究选取花青素特异性基因Sl3-GT与原花青素特异性基因SlANR开展验证试验。ChIP-qPCR、EMSA与双荧光素酶实验结果显示,SlMYB54可特异性结合原花青素合成基因SlANR的启动子,无法结合花青素合成基因Sl3-GT;SlAN2-like仅能激活Sl3-GT转录,二者均可结合自身基因启动子,通过自激活方式维持自身基因的特异性高表达。 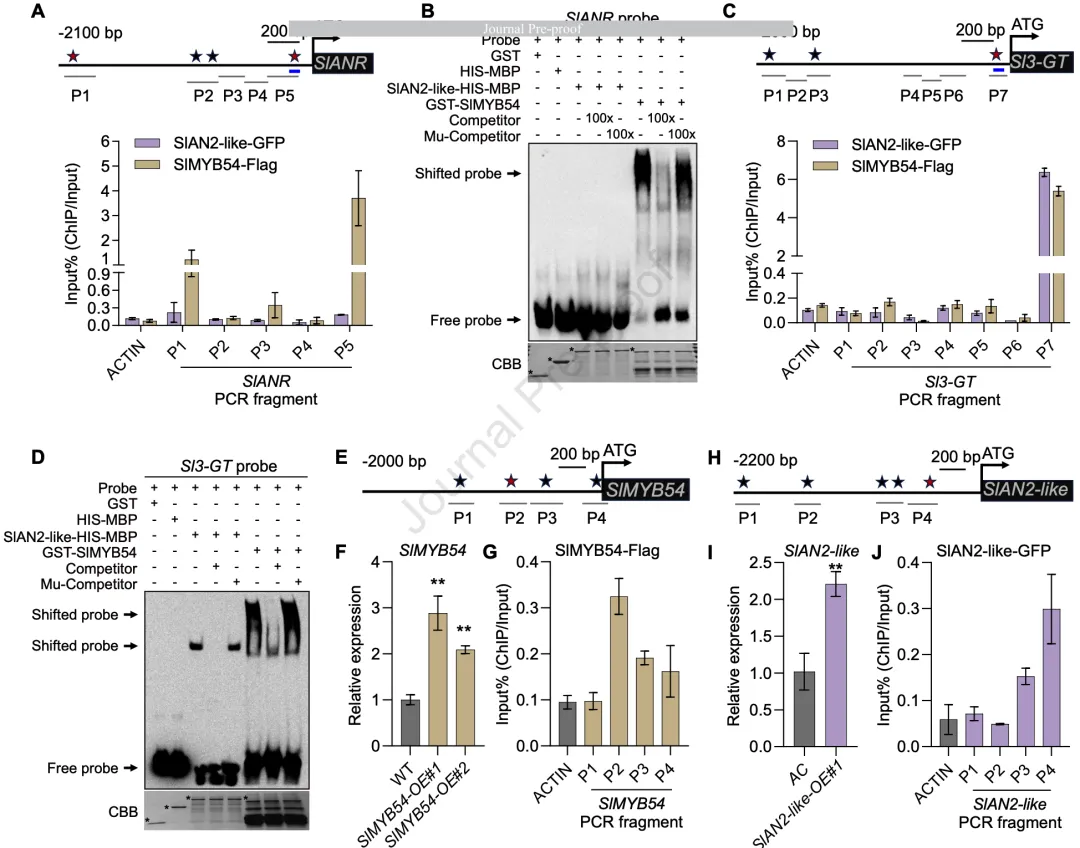
图3 SlMYB54特异性靶向原花青素结构基因而非花青素结构基因 研究发现SlMYB54过表达株系果皮紫色着色变浅、花青素积累下降,且该表型同样出现于SlMYB5过表达材料中,研究针对该现象提出两种调控机理并进行验证。一方面,SlMYB54异位表达可诱导果皮内原花青素特异性结构基因上调,消耗黄酮合成共同前体物质,但由于果皮缺少原花青素合成必需的调控元件与结构基础,并不会生成原花青素;另一方面,异位表达的SlMYB54能够干扰花青素调控通路,降低花青素合成相关基因的转录水平。研究进一步通过酵母三杂交与体外pull-down竞争蛋白互作试验证实,SlMYB54与SlAN2-like可竞争性结合共同的互作蛋白SlAN1,二者结合能力此消彼长,蛋白浓度会反向影响彼此与SlAN1的结合效率,这种蛋白竞争模式能够抑制SlAN2-like介导的花青素合成通路,进一步固化花青素与原花青素在番茄果实内的组织特异性分布特征。 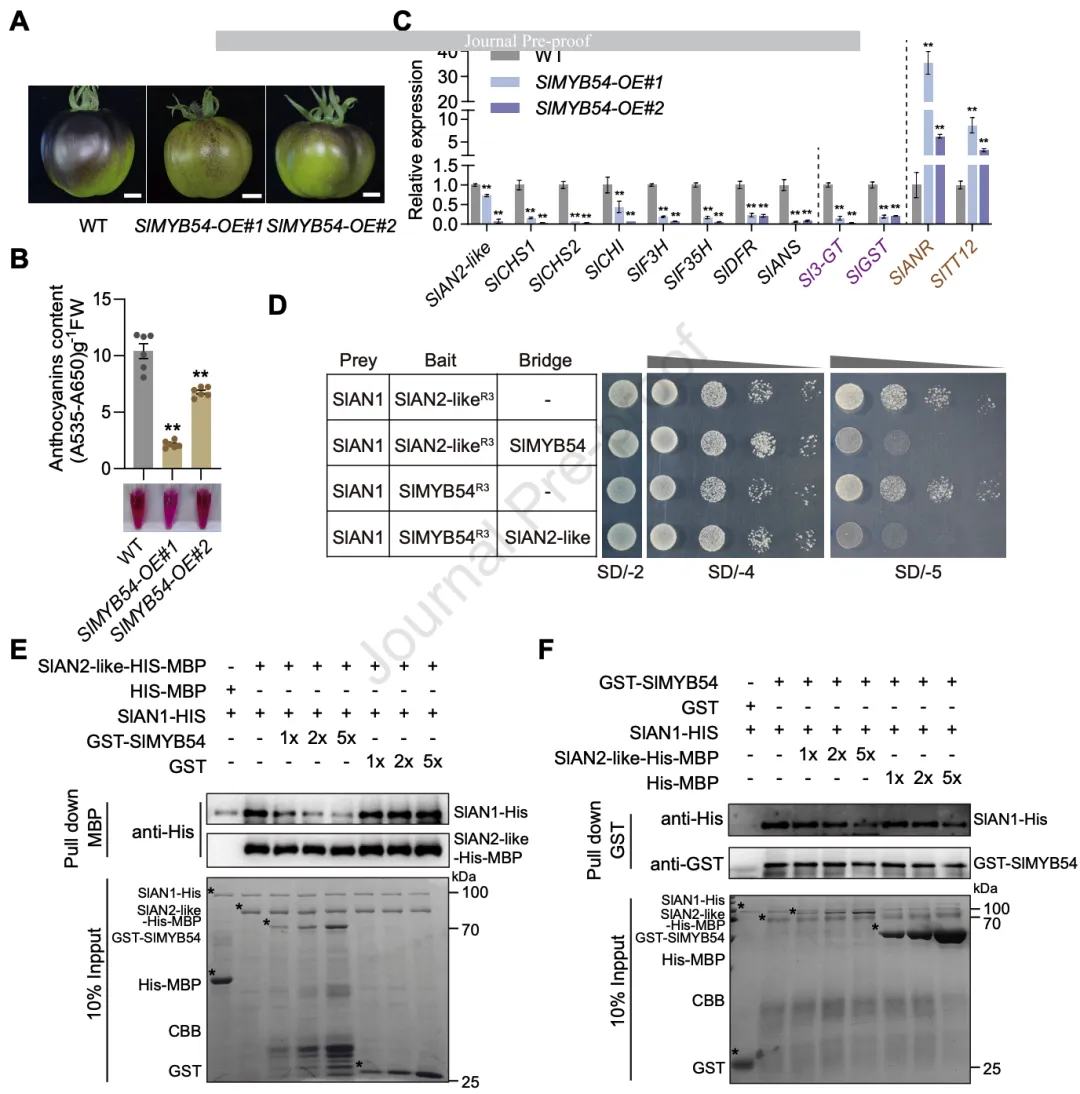
图4 SlMYB54干扰SlAN2-like与SlAN1的互作并抑制花青素合成 研究对另一bHLH家族成员 SlJAF13 开展功能验证,通过基因编辑、双突变体创制以及基因回补试验明确其调控特征。SlJAF13仅在果皮中高表达,专一调控花青素合成,对种子原花青素无影响;SlJAF13位于SlAN1上游,可直接结合SlAN1启动子激活其转录,过表达SlAN1可部分恢复Sljaf13突变体的花青素缺陷表型;原花青素合成缺陷突变体种子萌发速度更快、种皮机械强度更低。这些结果表明,种子内原花青素的积累能够有效阻止果实内种子的过早萌发。由此可见,种子内原花青素的积累构成了一种内在的存活机制,该机制可在种子仍处于果实内的传播阶段,有效防止其提前萌发。 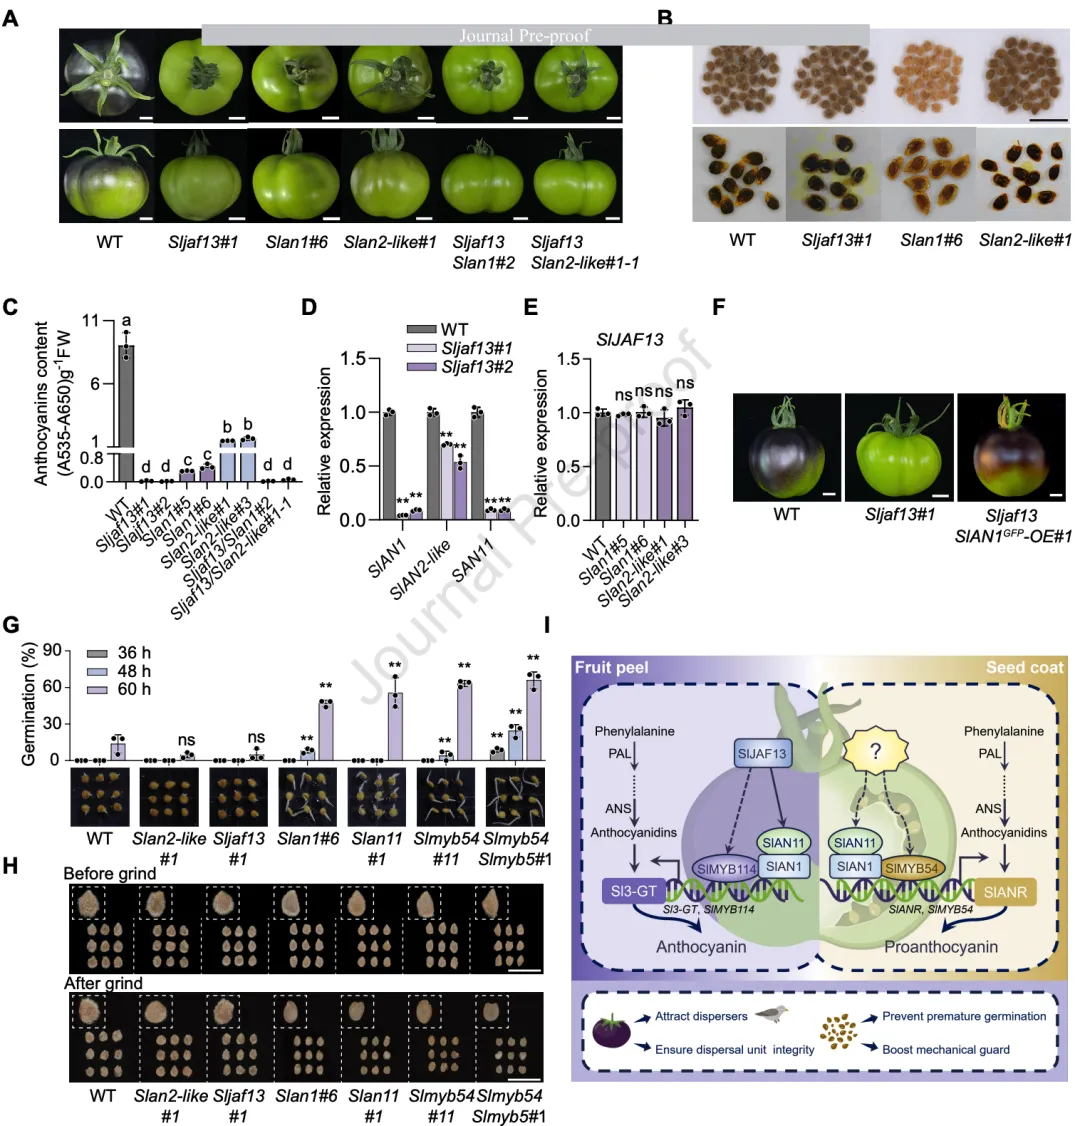
图5 SlJAF13位于SlAN1上游特异性调控花青素合成,原花青素合成基因突变促进种子萌发、降低种皮硬度研究完整解析了番茄果实中花青素与原花青素组织特异性积累的分子调控机制,填补了番茄种子原花青素调控通路的研究空白,阐明了两类黄酮物质空间分隔积累的进化意义,证实其形成双层防护机制保障种子传播,为培育高黄酮、高营养番茄品种提供精准靶点,可通过调控组织特异性MYB通路,定向提升番茄可食用部位黄酮含量;同时明确的调控网络也为其他园艺作物黄酮代谢改良提供参考,为解析植物次生代谢产物空间分布调控机制提供重要理论依据。 原文链接:https://doi.org/10.1016/j.xplc.2026.101886 文献简报 JIPB | 山东农业大学李传友团队揭示番茄磷饥饿响应的动态调控模块:SlMED25与SlSPX2竞争性结合SlPHR3的分子天平 Hortic Res | 华中农业大学徐强团队揭示紫皮黄皮中柠檬酸与花青素协同积累的分子机制 Plant Commun | 山东农大崔海涛/薛丽团队揭示水稻广谱抗病基因OsCRRSP1的免疫调控功能 New Phytol | 南京农大吴俊/山东农大薛程团队揭示梨果实“石细胞”形成机制:生长素与赤霉素信号的协同调控 JIPB | 中国农业大学刘兴旺/任华中团队揭示一个基因搞定黄瓜单倍体诱导:CsPOD7的新功能 New Phytol | 北京大学焦雨铃团队揭示小麦小花肥力调控新机制显著增加每穗粒数 PBJ | 双子叶植物叶角调控分子机制:TAC1-PIN3模块 Plant Commun | 山东农大李向东/田延平与华中农大洪霓团队揭示脱水蛋白COR15协同RNA沉默对抗病毒侵染机制

本文来自网友投稿或网络内容,如有侵犯您的权益请联系我们删除,联系邮箱:596563534@qq.com 。
