当前位置:首页>农业>EEB|南京农业大学于景金教授团队揭示环境-激素-碳代谢互作:CO₂升高促进草坪草匍匐茎生长的新机制

EEB|南京农业大学于景金教授团队揭示环境-激素-碳代谢互作:CO₂升高促进草坪草匍匐茎生长的新机制

  • 2026-10-29 21:46:18
EEB|南京农业大学于景金教授团队揭示环境-激素-碳代谢互作:CO₂升高促进草坪草匍匐茎生长的新机制

点击上方蓝字"译景小筑",关注我们

文献标题:Elevated [CO₂] Alleviates AsGH3.8-Mediated Stolon Growth Inhibition via IAA Accumulation and Soluble Sugar Reduction in Perennial Grass文献译名:高浓度 CO₂通过生长素 IAA 积累与可溶性糖降低缓解多年生草本植物 AsGH3.8 介导的匍匐茎生长抑制期刊名称:Environmental and Experimental Botany发表时间:2026 年 04 月 25日影响因子:4.7一作单位:南京农业大学草业学院通讯作者:于景金 教授通讯邮箱:nauyjj@njau.edu.cn项目基金:本研究由国家自然科学基金(32471773、32401474)资助完成。

01

研究背景

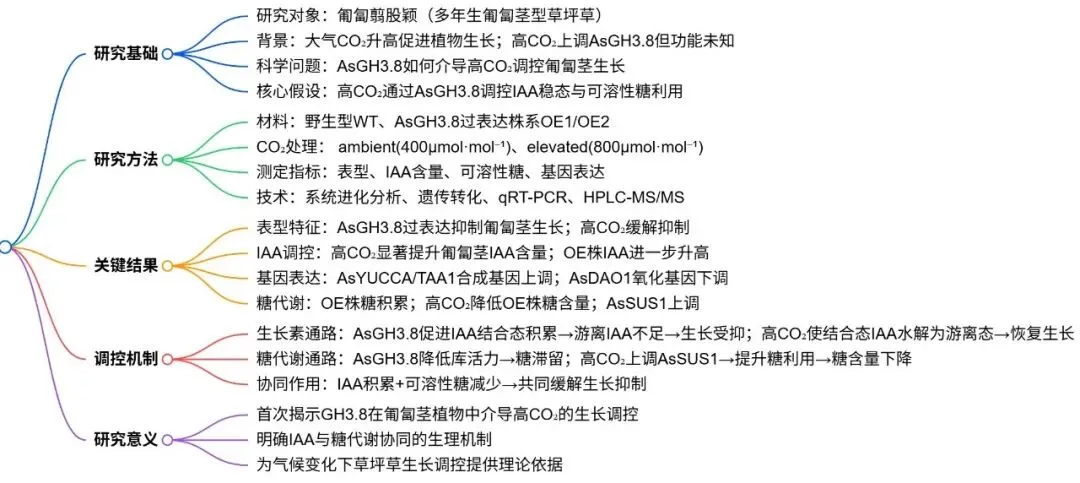
大气二氧化碳浓度([CO₂])的稳步上升直接影响着植物的代谢过程与生长发育。已有广泛研究证实,[CO₂]升高能够显著促进多种禾本科植物的地上部及根系生长。匍匐茎作为植物营养繁殖的重要器官,其快速生长对于草坪的建植与密度至关重要。匍匐翦股颖(Agrostis stolonifera)是一种广泛应用于高尔夫球场和城市绿地的多年生冷季型草坪草,以其旺盛的匍匐茎生长能力而著称。在[CO₂]升高条件下,匍匐翦股颖的匍匐茎发育受到显著促进,这使其成为研究环境碳浓度变化对植物营养器官生长调控机制的理想对象。

植物内源激素与碳水化合物在响应[CO₂]升高并调控生长发育的过程中发挥着核心作用。作为关键的植物激素,生长素(IAA)的稳态受合成、降解及结合等代谢途径中诸多基因(如YUCCA、TAA、DAO和GH3)的严格调控。研究表明,[CO₂]升高不仅能促进植物体内IAA的积累,还能诱导可溶性糖在匍匐茎节和节间中的富集。前期观察发现,在[CO₂]升高刺激匍匐翦股颖匍匐茎生长的过程中,生长素结合基因AsGH3.8的表达量出现显著上调。然而,GH3.8基因在这一过程中的具体功能特征,以及其如何参与调控[CO₂]升高诱导的匍匐茎生长,目前仍是该领域尚未阐明的空白。

阐明特定基因在复杂环境与激素互作网络中的调控机制是当前面临的核心挑战。基于此,研究假设在[CO₂]升高条件下,上调表达的AsGH3.8基因可能通过调节IAA稳态,进而促进匍匐茎节和节间中可溶性糖的利用与生长。通过构建并利用过表达AsGH3.8的匍匐翦股颖转基因株系,在不同[CO₂]浓度下系统评估其生理与转录层面的响应差异。这一探索不仅有助于揭示GH3.8基因在匍匐茎发育中的具体功能,还将深入解析生长素介导[CO₂]升高促进植物生长的潜在生理机制,为应对全球气候变化及优化优良草坪草品种的培育提供重要的理论依据。

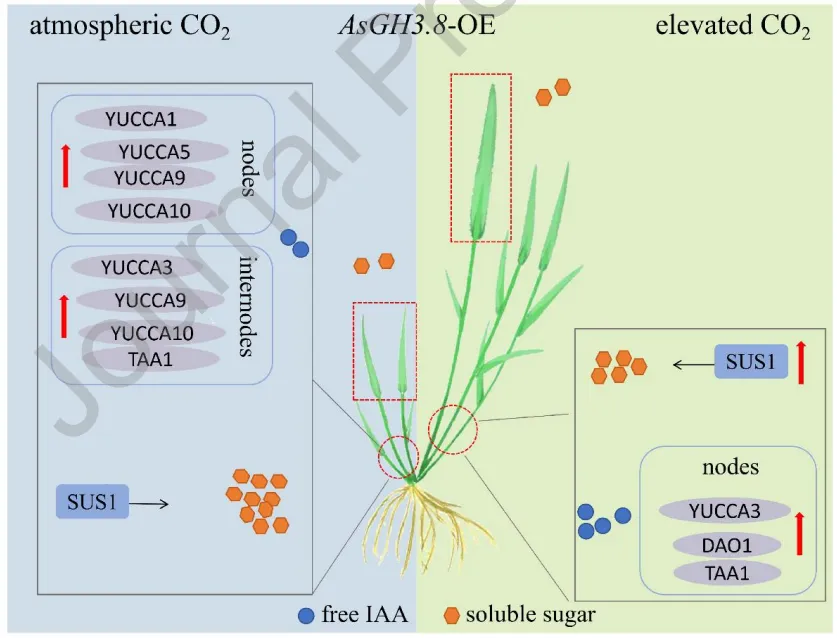
本研究揭示了大气CO₂浓度升高通过重编程生长素代谢以促进IAA积累,并上调蔗糖合成基因(AsSUS1)加速可溶性糖的利用,从而有效缓解了由AsGH3.8基因过表达引起的匍匐翦股颖匍匐茎生长抑制。

02

研究结果

2.1  试验材料与处理设计

为探讨AsGH3.8基因在不同二氧化碳浓度下的生理功能,研究以匍匐翦股颖(cv. Penn A-4)为试验材料,通过克隆AsGH3.8基因编码序列并利用农杆菌介导法转化胚性愈伤组织,成功构建并筛选出高表达的AsGH3.8过表达(OE)株系。随后,将野生型与转基因株系水培于人工气候室中进行对照试验。在受控环境(光合有效辐射600 µmol·m⁻²·s⁻¹)下定植后,分别施以环境[CO₂](400 ± 10 μmol⋅mol⁻¹)和升高[CO₂](800 ± 10 μmol⋅mol⁻¹)处理42天,以评估不同碳浓度环境对植物生长的影响。

2.2 生理生化指标测定

在目标处理完成后,系统测定了植物的形态学与生理生化响应。首先测量了地上部高度、根长、叶片尺寸及匍匐茎节间长度等生长指标,并经烘干法量化了地上部与根系生物量。为解析激素调控机制,提取了节与节间组织中的内源生长素(IAA),并依托HPLC-MS/MS技术平台进行了精准定量。此外,采用改进的苯酚-硫酸比色法,在490 nm波长下测定吸光度并结合标准曲线,量化了各组织中的总可溶性糖含量,以评估碳水化合物的积累与分配情况。

2.3 基因表达分析与统计学评估

为从分子层面揭示调控网络,提取了处理后组织的总RNA并逆转录为cDNA,以AsACTIN为内参基因,采用2⁻ΔΔCT法通过qRT-PCR技术评估了目标基因的相对表达水平。所有试验数据均导入SPSS 26软件进行统计学处理,运用学生t检验和单因素方差分析(ANOVA)对不同处理组及株系间的差异进行显著性检验(显著性阈值设定为p < 0.05、0.01和0.001),最终使用GraphPad Prism软件完成数据的可视化呈现。

03

研究结果

3.1  GH3.8家族及匍匐翦股颖AsGH3.8的系统发育分析

  • 进化关系:构建系统发育树揭示AsGH3.8与小麦TaGH3.8具有高度同源性。

  • 结构特征:序列比对证实AsGH3.8包含高度保守的Pfam结构域。

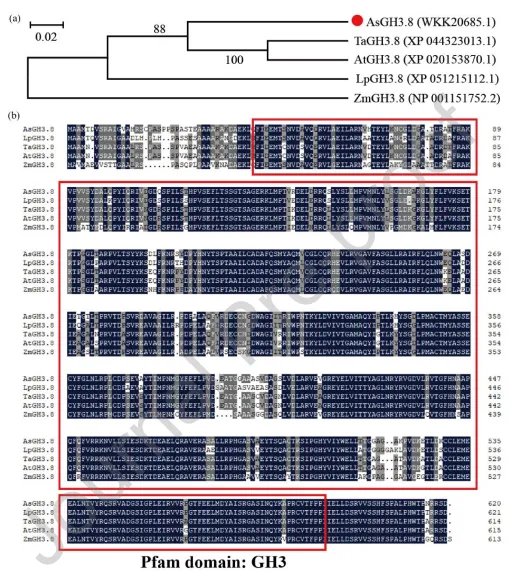
为探究匍匐翦股颖中GH3.8的进化关系,利用代表性植物(包括小麦、拟南芥、多年生黑麦草和玉米)的GH3.8蛋白构建了系统发育树,发现AsGH3.8与小麦TaGH3.8同源性最高。进一步的蛋白序列比对表明,这些GH3.8成员均具有一个高度保守的Pfam结构域,这是该蛋白家族特有的功能区域(Fig. 1)。

图1. AsGH3.8的系统发育分析。 (a) 基于邻接法使用MEGA7构建的不同物种系统发育树。(b) 氨基酸序列比对。红框表示GH3.8蛋白特有的Pfam功能结构域。

3.2. 过表达AsGH3.8匍匐翦股颖的表型特征

  • 株系筛选:成功获得并筛选出高表达的OE1和OE2转基因株系。

  • 生长抑制:过表达显著抑制了叶片长度和匍匐茎节间及总长度。

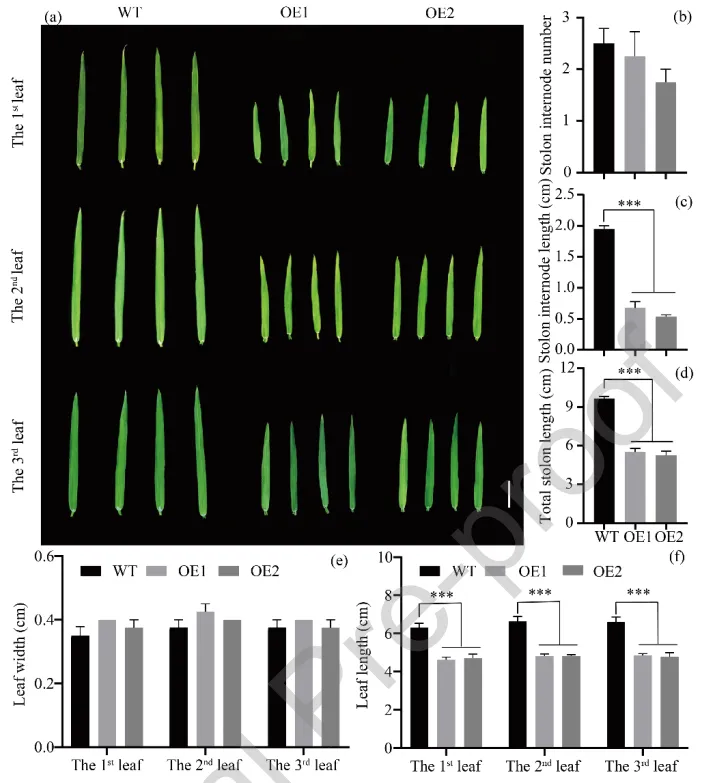
为探究AsGH3.8在植物生长中的潜在作用,在匍匐翦股颖中过表达该基因并筛选出高表达株系(OE1和OE2)。表型观察显示,过表达AsGH3.8显著抑制了植株生长,转基因株系的完全展开叶长度、匍匐茎节间长度及匍匐茎总长度均显著低于野生型,但叶宽和匍匐茎节间数量无显著差异(Fig. 2)。

图2. 过表达AsGH3.8匍匐翦股颖的表型特征。 (a) 匍匐翦股颖株系的叶片表型。比例尺 = 1 cm。(b) 匍匐茎节间数量。(c) 匍匐茎节间长度。(d) 匍匐茎总长度。(e) 叶宽。(f) 叶长。表示根据学生t检验,WT与AsGH3.8*-OE株系之间存在显著差异。显著性水平:*** p < 0.001。误差棒代表标准误(n = 5)。

3.3. 升高[CO₂]下过表达AsGH3.8匍匐翦股颖的表型特征

  • 表型差异:无论环境还是升高[CO₂]下,过表达株系生长均弱于野生型。

  • 促生作用:升高[CO₂]显著促进了野生型和过表达株系的地上地下部生长。

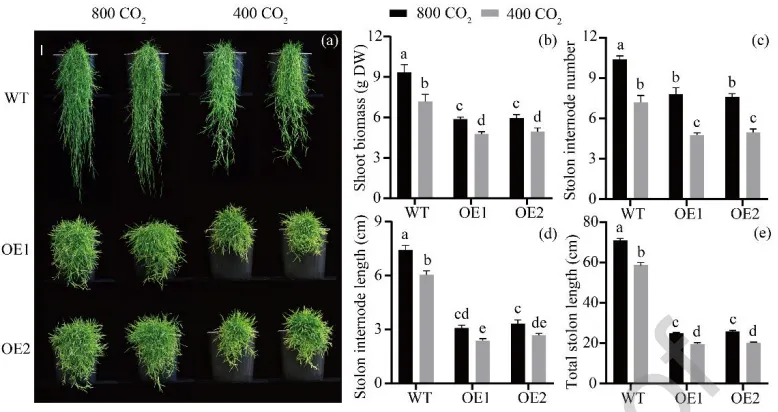
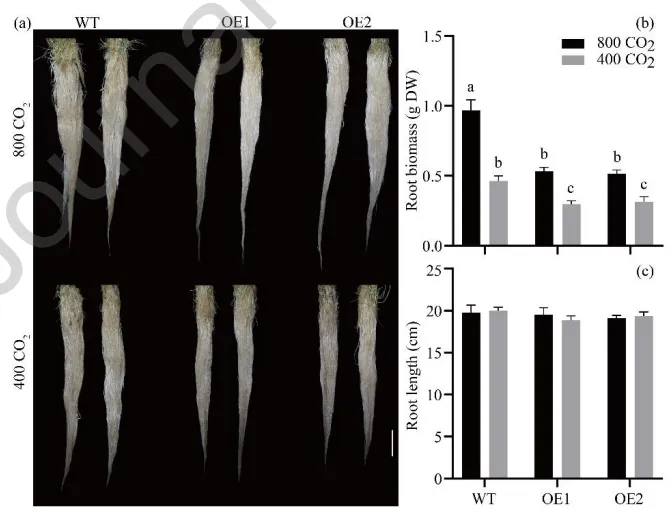
在环境和升高[CO₂]条件下,评估了AsGH3.8基因及[CO₂]对植物生长的影响。结果表明,无论在何种[CO₂]水平下,过表达株系的地上部和根系生物量、匍匐茎节间数量及长度等指标均显著低于野生型。然而,与环境[CO₂]相比,升高[CO₂]显著促进了野生型和转基因株系的地上部和根系生物量积累以及匍匐茎的伸长与节间发育,但对根长无显著影响(Fig. 3,Fig. 4)。

图3. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖地上部表型的影响。 比例尺 = 5 cm。(a) 地上部表型。(b) 地上部生物量。(c) 匍匐茎节间数量。(d) 匍匐茎节间长度。(e) 匍匐茎总长度。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 5)。DW = 干重。

图4. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖根系表型的影响。 比例尺 = 3 cm。(a) 根系表型。(b) 根系生物量。(c) 根长。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 5)。DW = 干重。

3.4. 过表达AsGH3.8匍匐翦股颖内源生长素含量分析

  • 环境浓度:环境[CO₂]下过表达株系节与节间IAA含量高于野生型。

  • 升高浓度:升高[CO₂]进一步显著增加了各株系匍匐茎中的IAA含量。

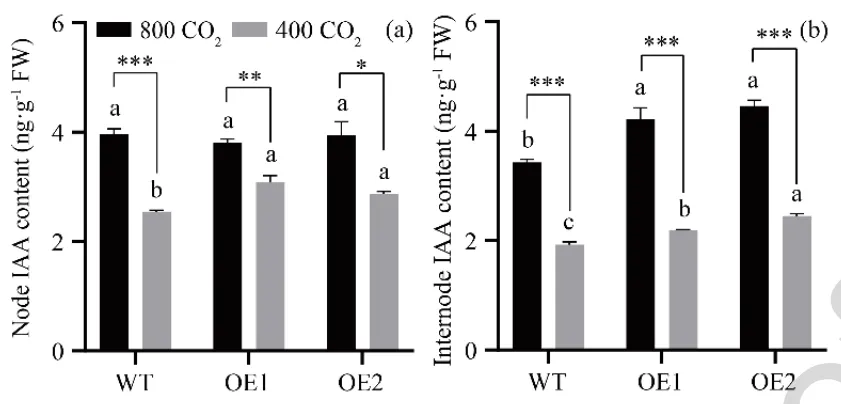
为探究AsGH3.8在升高[CO₂]下调控植物生长的潜在作用,对内源IAA含量进行了定量分析。在环境[CO₂]下,过表达株系节和节间的IAA含量均高于野生型。在升高[CO₂]下,过表达株系节间的IAA含量显著高于野生型,但节中无显著差异。与环境[CO₂]相比,升高[CO₂]显著提升了野生型和过表达株系节与节间中的IAA水平,大幅促进了匍匐茎中IAA的积累(Fig. 5)。

图5. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖节和节间IAA含量的影响。 (a) 节IAA含量。(b) 节间IAA含量。在每个图中,不同字母分别表示根据F检验(p < 0.05),在环境或升高[CO₂]下WT与AsGH3.8-OE株系之间存在显著差异。表示根据学生t检验,环境和升高[CO₂]之间存在显著差异。显著性水平:p < 0.05,** p < 0.01,*** p < 0.001。误差棒代表标准误(n = 3)。FW = 鲜重。

3.5. 过表达AsGH3.8匍匐翦股颖中生长素代谢相关基因的表达

  • 节内表达:升高[CO₂]上调过表达株系部分合成基因并下调氧化基因。

  • 节间表达:升高[CO₂]下调过表达株系多数合成基因及氧化基因。

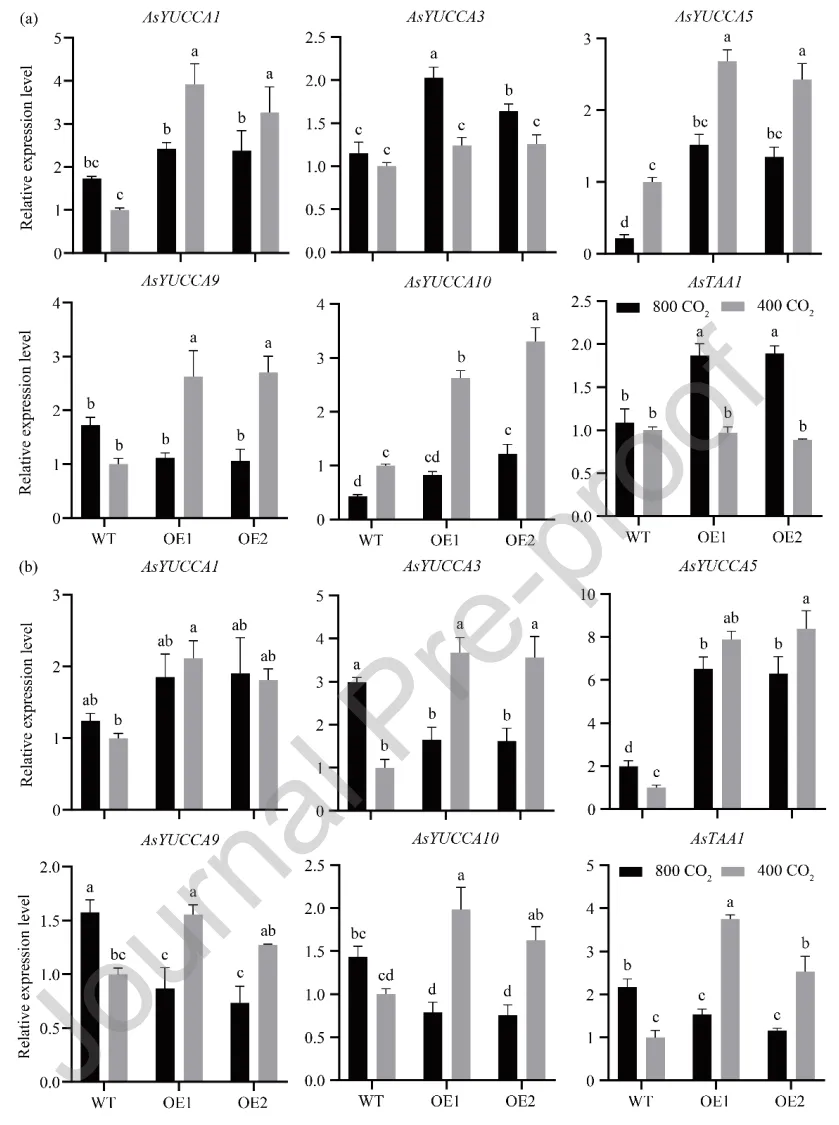
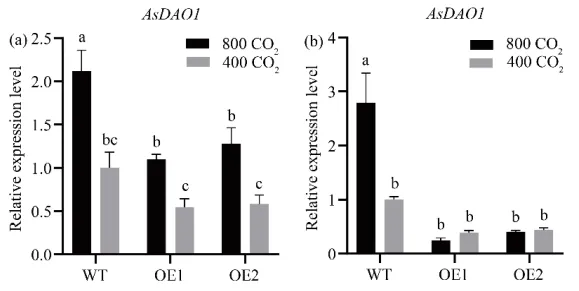
为确定升高[CO₂]对生长素代谢基因表达的影响,分析了节和节间中生长素合成(AsYUCCA系列、AsTAA1)及氧化(AsDAO1)基因的表达水平。在节中,环境[CO₂]下过表达株系多个合成基因显著上调;升高[CO₂]诱导过表达株系部分合成基因上调,同时下调了氧化基因AsDAO1。在节间中,环境[CO₂]下过表达株系多数合成基因上调;而升高[CO₂]则导致过表达株系中除AsYUCCA5外的多数合成基因及氧化基因表达下调。这表明升高[CO₂]对野生型和转基因株系的生长素代谢基因引发了截然不同的转录重编程(Fig. 6,Fig. 7)。

图6. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖节和节间生长素合成基因表达水平的影响。 (a) 节中的基因表达。(b) 节间中的基因表达。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 3)。

图7. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖节和节间生长素氧化基因表达水平的影响。 (a) 节中AsDAO1的表达。(b) 节间中AsDAO1的表达。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 3)。

3.6. 过表达AsGH3.8匍匐翦股颖的可溶性糖含量

  • 叶与节内:升高[CO₂]增加野生型节内糖含量,但降低过表达株系糖含量。

  • 节间与根:升高[CO₂]显著降低了过表达株系节间和根系的总可溶性糖含量。

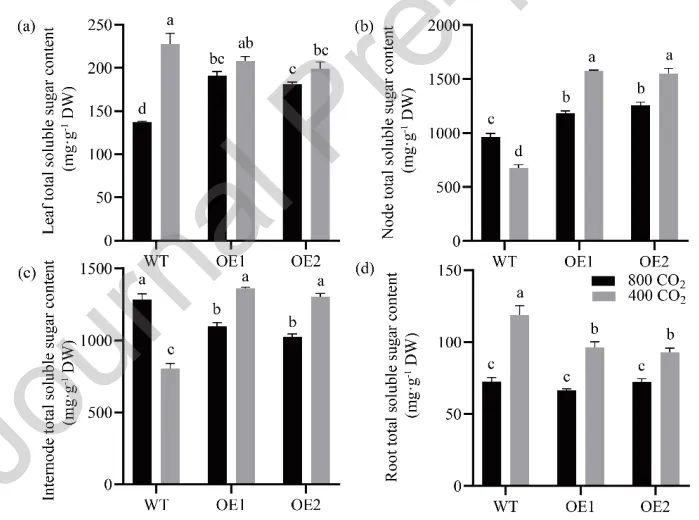
测定了不同组织中的总可溶性糖含量以评估碳分配。在叶片中,升高[CO₂]显著降低了野生型的糖含量,而过表达株系维持较高水平。在匍匐茎节和节间中,环境[CO₂]下过表达株系的糖含量均显著高于野生型;当处于升高[CO₂]时,野生型的糖含量显著增加,而过表达株系的糖含量则出现显著下降。在根系中,升高[CO₂]同样导致野生型和过表达株系的总可溶性糖含量显著降低(Fig. 8)。

图8. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖叶片、节、节间和根系中总可溶性糖含量的影响。 (a) 叶片总可溶性糖含量。(b) 节总可溶性糖含量。(c) 节间总可溶性糖含量。(d) 根系总可溶性糖含量。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 4)。DW = 干重。

3.7. 过表达AsGH3.8匍匐翦股颖中蔗糖合成基因的表达

  • 节内表达:升高[CO₂]下调野生型AsSUS1表达,但上调过表达株系表达。

  • 节间表达:升高[CO₂]显著提升了过表达株系节间中AsSUS1的表达水平。

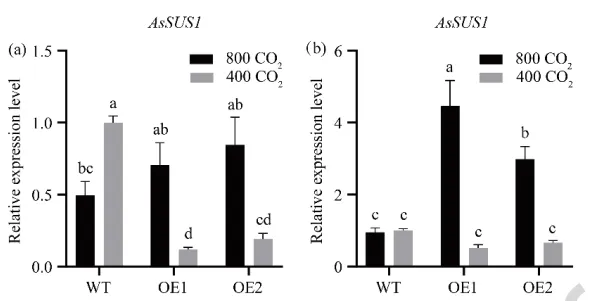
分析了蔗糖合成基因AsSUS1的表达模式。在匍匐茎节中,环境[CO₂]下过表达株系的AsSUS1表达量显著低于野生型;但在升高[CO₂]下,野生型表达下调,而过表达株系表达上调。在匍匐茎节间中,环境[CO₂]下两株系无显著差异;而在升高[CO₂]处理下,过表达株系中AsSUS1的表达量被显著诱导并高于野生型,表明升高[CO₂]激活了转基因株系中蔗糖代谢相关基因的转录(Fig. 9)。

图9. [CO₂]对过表达AsGH3.8和WT匍匐翦股颖节和节间蔗糖合成基因表达水平的影响。 (a) 节中AsSUS1的表达。(b) 节间中AsSUS1的表达。在每个图中,不同字母表示根据F检验(p < 0.05),条形图中各处理比较存在显著差异。误差棒代表标准误(n = 3)。

04

研究创新性

  • 首次阐明GH3基因在匍匐茎植物响应升高[CO₂]中的功能:本研究率先在匍匐型草坪草(匍匐翦股颖)中对生长素结合基因AsGH3.8进行了功能表征。论文在讨论部分明确指出,这是首次报道GH3家族基因在升高[CO₂]环境下对匍匐茎植物具有生长抑制作用,填补了该基因在特定植物株型发育及应对环境变化研究中的空白。

  • 揭示了升高[CO₂]缓解基因介导的生长抑制的新现象:研究创新性地发现,环境因素(升高的[CO₂])能够有效缓解甚至逆转由过表达AsGH3.8基因引起的植株矮化、生物量下降和匍匐茎生长抑制现象。这一发现为理解植物如何通过环境响应来克服内在遗传限制(激素失衡)提供了全新的视角。

  • 解析了“环境-激素-碳代谢”互作的分子生理机制:研究深入挖掘了表型恢复背后的深层机制,揭示了升高[CO₂]通过引发转基因植物中生长素代谢的转录重编程(调节AsYUCCA、AsTAA1和AsDAO1等基因,促进IAA积累),进而恢复了受抑制植物的“库”强度(Sink strength)。

  • 阐明了生长素调控可溶性糖利用的下游路径:研究突破性地将激素信号与碳水化合物分配联系起来,证明了在升高[CO₂]条件下,积累的IAA通过上调蔗糖合成基因AsSUS1的表达,加速了匍匐茎节和节间中储存的可溶性糖的消耗与利用,从而为匍匐茎的快速伸长提供能量和物质基础。

  • 构建了响应全球气候变化的植物生长调控新模型:本研究将大气[CO₂]浓度升高、内源激素(生长素)稳态调控以及碳代谢(糖利用)紧密结合,构建了AsGH3.8介导升高[CO₂]促进植物生长的完整工作模型(Fig. 10)。这为未来气候变化背景下,利用基因工程手段培育快速建植、高密度的优良匍匐型草坪草品种提供了重要的理论依据。

审核|林蘖亙阅读科研文献,荟萃前沿进展

欢迎关注、转发、投稿、点赞

最新文章

随机文章